
Context
Com va ser i com es va comportar la primera bomba que efectivament va transportar un ió d’un costat a l’altre d’una membrana? Quina o quines van ser les primeres? Una bomba de sodi va ser la primera? D’on van extreure l’energia i, el mecanisme va ser inicialment eficaç? Quants ions es transportaven en cada actuació de la bomba? La bomba ja inicialment podia co-transportar diferents ions en el mateix sentit o en sentits oposats? En aquell moment de l’evolució, quin avantatge va aportar aquesta novetat i la formació de gradients?
L’ió i la bomba de sodi seran fonamentals pel funcionament del sistema nerviós.
El sodi estel·lar amb els 23 nucleons (recordem que un nucleó és qualsevol de les partícules hadròniques -neutrons o protons- que componen el nucli d’un àtom) el podríem trobar finalment en mig de la sopa de molècules i altres ions en un basal fangós i de poca fondària. Una barreja de molècules lipídiques, àcids grassos, triglicèrids i fosfolípids hi formen estructures membranoses en aquests llocs i ben segur podríem veure grans i petites vesícules tancades amb alguna altra molècula no lipídica, però amb certa lipofília, atrapada en la mateixa membrana. Algunes vesícules més petites també les veuríem retingudes en l’interior de les més grans. Algunes de les molècules segrestades són polímers d’aminoàcids, d’hidrats de carboni i altres molècules amb nitrogen en particular àcids nucleics. En algun moment aquestes, diguem-ne protocèl·lules, acabaran obtenint energia en trencar algunes de les molècules retingudes per així mantenir-se o créixer, reestructurar-se i potser partir-se en dos o més fragments.
En els primers temps d’aquests esdeveniments, la compartimentació membranosa deixava de segur la mateixa concentració d’ions i altres constituents a costat i costat de cada membrana, i per tant sense gradients iònics transmembrana establerts clarament. A la vista de com han anat les coses, potser va passar que algunes molècules, en funció de la seva particular geometria i afinitat o solubilitat en diferents combinacions de lípids, es devien inserir de forma diferencial en membranes internes i externes.
Podem recordar que entre aquestes molècules trobem proteïnes que porten l’aminoàcid glicina i, una d’elles, un canal de calci, també el nostre carboni que podríem continuar seguint amb la nostra aproximació al valor dels elements estel·lars en la formació de la vida.
Algunes molècules entre totes aquelles serien ben similars als canals iònics actuals amb filtres de selectivitat rudimentaris i portes fluctuants amb certes probabilitats d’obertura i tancament (veurem aquestes estructures i les seves propietats associades més endavant en el capítol 37 d’aquesta secció), encara que serien canals sense flux efectiu d’ions donada la presumpta inexistència, encara, de gradients de concentració d’ions carregats i en conseqüència tampoc gradients elèctrics.
En algun moment van sorgir les bombes iòniques i l’establiment dels primers gradients químics d’aquestes partícules. Per explicar aquell moment sorgeixen moltes preguntes. Com va ser i com es va comportar la primera bomba que efectivament va transportar un ió d’un costat a l’altre d’una membrana? Quina o quines van ser les primeres? Una bomba de sodi va ser la primera? D’on van extreure l’energia i, el mecanisme va ser inicialment eficaç? Serien primerament comportes giratòries, com les dels hotels clàssics i com algunes portes d’entrada d’edificis institucionals? Si fora així, augmentaren l’eficàcia amb l’obtenció d’energia (de l’ATP o alguna altra molècula abans)? Quants ions es transportaven en cada actuació de la bomba? La bomba ja inicialment podia co-transportar diferents ions en el mateix sentit o en sentits oposats? En aquell moment de l’evolució quin avantatge va aportar aquesta novetat i la formació de gradients?
Aquestes preguntes i moltes més poden ser pertinents amb els nostres coneixements actuals. En aquesta descripció m’inclino per un dels possibles esdeveniments més senzills i també més proper o similar a la situació actual, al mecanisme actual, l’aparició d’una bomba de sodi (i potassi). La finalitat avantatjosa va ser amb gran probabilitat la utilització del moviment d’ions com a element de senyalització, primàriament, directament per l’efecte transportador de la bomba o bé secundàriament per l’aprofitament del gradient creat per la bomba per canals iònics propers (formats amb tota probabilitat al mateix temps que la bomba o posteriorment), com anirem veient.
Així doncs, en algun moment en l’inici de l’evolució cel·lular podríem trobar-nos amb una bomba de sodi (i potassi) semblant a l’actual. Seria una molècula millorada respecte a versions anteriors amb un funcionament tosc, però. Seria una molècula integral de la membrana cel·lular, una proteïna o glicoproteïna amb capacitat d’agafar ions sodi del mitjà intracel·lular i extraure’ls a l’exterior. Si fora semblant a l’actual, l’ió sodi fora l’únic que podria extreure i mai funcionaria promovent o facilitant l’entrada de sodi. Va poder funcionar desacoblada de qualsevol co-transport, però en aquest cas l’eficàcia en l’extracció del sodi estaria al voltant d’un 10% solament de la seva capacitat arran de l’acoblament al transport de potassi cap a l’interior. Acoblada, desacoblada o potser podria haver estat de les dues maneres en el decurs del seu període de prova i selecció evolutiva. Podria haver ocorregut que l’aminoàcid glicina, amb el carboni que també hem seguit, hagués estat implicat en la configuració de la seqüència particular d’aminoàcids millorada per a la funció de translocació.
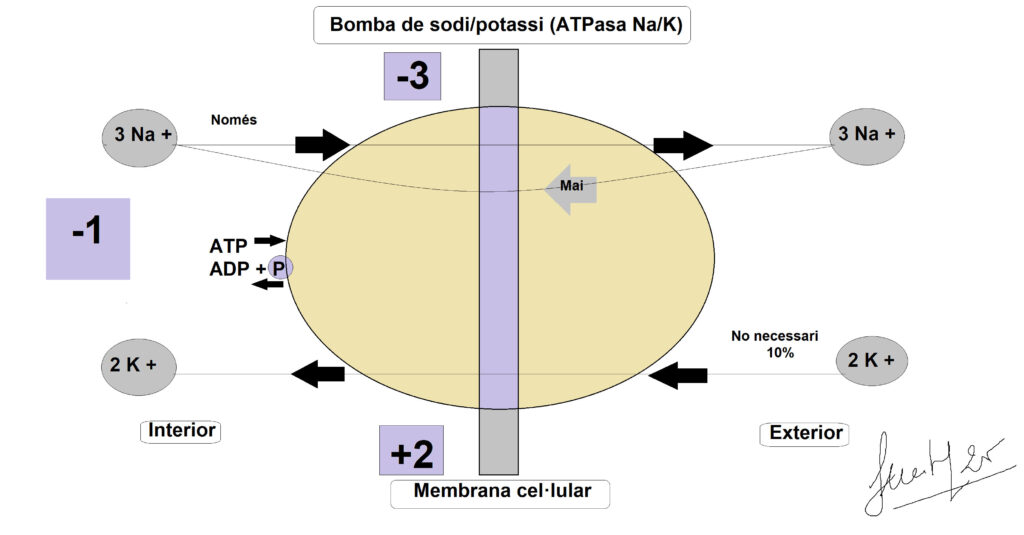
Figura 51. La figura recull alguns aspectes del funcionament de la bomba de sodi.
En algun moment, la nova bomba, a causa de la seva polaritat i activitat direccional en la membrana, va poder moure l’ió sodi des de la seva posició, retingut en l’interior d’una protocèl·lula durant la seva formació, i mobilitzar-lo cap a l’exterior a canvi d’ions potassi (potassi que aviat veurem quin és el seu origen i d’on prové). En realitat, la capacitat d’aquesta bomba permetia extreure tres ions sodi i interioritzar dos de potassi en un sol procés de translocació (vegeu figura 51).
Malgrat el moviment de dos elements en direccions oposades, amb una solitària càrrega elèctrica positiva cadascun (per la pèrdua d’un electró en la seva superfície reactiva en el procés d’ionització en solució aquosa), el resultat no va ser el d’un equilibri elèctric, un ió positiu que entra i un que surt. L’arquitectura de la bomba funcionava correctament amb la sortida de tres càrregues positives (tres ions sodi) i l’entrada de dues (dos ions potassi).
Aquest fenomen, deixà la cara interna més íntima de la membrana cel·lular amb una càrrega positiva de menys o, el que elèctricament és el mateix, una negativa de més. Si les concentracions dels ions sodi i potassi eren com les actuals o si semblaven, aquesta asimetria de càrregues es podria quantificar com a generadora de sis mil·livolts en la forma de diferència de potencial elèctric, negatiu en l’interior cel·lular i contribuir o bé esdevenir un intent de construir un potencial de membrana en situació de repòs com el coneixem avui.
L’energia per a la realització dels moviments de la bomba, l’energia per produir el canvi de conformació necessari per al moviment i translocació (suposant que en aquells primers moments la cosa fora com actualment), es trauria del trencament d’una o unes poques molècules de l’ATP. De fet, la bomba hauria adquirit i ja tindria ella mateixa, la capacitat ATPàsica, la de trencar l’ATP per utilitzar l’energia dels seus enllaços de fòsfor. En ser activada, potser constitutivament en agafar 3 ions sodi des del costat interior de la membrana, la bomba trencaria una molècula d’ATP i s’autofosforilaria (vegeu el significat de la fosforilació de proteïnes i altres molècules en el capítol 19) canviant de conformació, “girant” en la membrana i extraient els ions sodi cap a fora. En aquesta posició deixaria anar el sodi, es desfosforilaria en agafar 2 ions potassi exteriors i amb aquest canvi nou recuperaria la conformació inicial, “rotant” i portant el potassi cap a l’interior.
Així, el protagonista d’aquest capítol, el nostre sodi hauria passat un temps dintre d’una cèl·lula primitiva, atrapat per la formació de membranes lipídiques, abans de tornar a la sopa externa.
Entre les moltes molècules i ions presents en el mitjà extracel·lular i en l’interior de les protocèl·lules, també es van formar moltes espècies de canals iònics amb diferents especificitats i mecanismes d’actuació i, entre ells, canals de sodi que en obrir-se deixarien entrar sodi, ara de fora cap a dintre, aprofitant la progressiva disminució interna d’aquest ió produïda prèviament per l’acció de la bomba. En quedar finalment el sodi menys concentrat en l’interior, la diferència de concentració, el gradient de concentració, facilitaria l’entrada de l’ió pel canal. A més a més, amb més facilitat en aquesta nova circumstància creada per la mateixa bomba, donat que l’interior ara és un poc més negatiu per l’estequiometria de l’intercanvi sodi-potassi que acabem de valorar.
Totes aquestes fantàstiques coincidències de diferents molècules en la membrana de les primeres cèl·lules en un moment donat, i que aprofundirem més endavant, varen ser l’origen dels sofisticats mecanismes que avui coneixement amb força detall sobre el funcionament de les cèl·lules, especialment les cèl·lules nervioses i les musculars.
Així doncs, la membrana cel·lular permet separar ions diferents de costat i costat. Qualsevol cèl·lula que actualment es trenqui i es dissipi, més o menys, el gradient de concentració de sodi i potassi, pot recuperar-se si la membrana de greixos aconsegueix rejuntar-ne i fusionar-ne de nou els extrems. Això passa, per exemple, com hem comentat en un altre lloc abans, a les cèl·lules que en el moll de l’os donen lloc als eritròcits quan, ja madurs, travessen la paret dels capil·lars sanguinis del moll de l’os per passar a la sang (vegeu capítols 26 i 27). En aquest pas vascular, la membrana cel·lular es trenca i el nucli i altres orgànuls es perden, l’eritròcit ja trencat comença a circular, la membrana es tanca i la bomba de sodi-potassi recupera i manté el gradient de concentració d’aquests ions tan rellevants.
La figura 52 mostra la distribució a dintre i a fora d’una cèl·lula idealitzada dels ions més rellevants en el material biològic (sodi Na+, potassi K+, clor Cl– i altres anions A–). Els números representen la concentració en mil·limols. Sumant algebraicament els valors positius i negatius, les respectives càrregues elèctriques, veiem que hi ha efectivament electroneutralitat entre dintre i fora de la cèl·lula, és a dir el mateix nombre de càrregues positives i negatives dintre i fora. També podem sumar el nombre de partícules (expressades en mil·limols) dels dos signes a fora per veure com la suma dona el mateix que a dintre, mostrant aleshores l’equilibri osmòtic. Electroneutralitat i equilibri osmòtic són les dues bases rellevants per a l’estabilitat dels gradients i, per tant, de les cèl·lules.
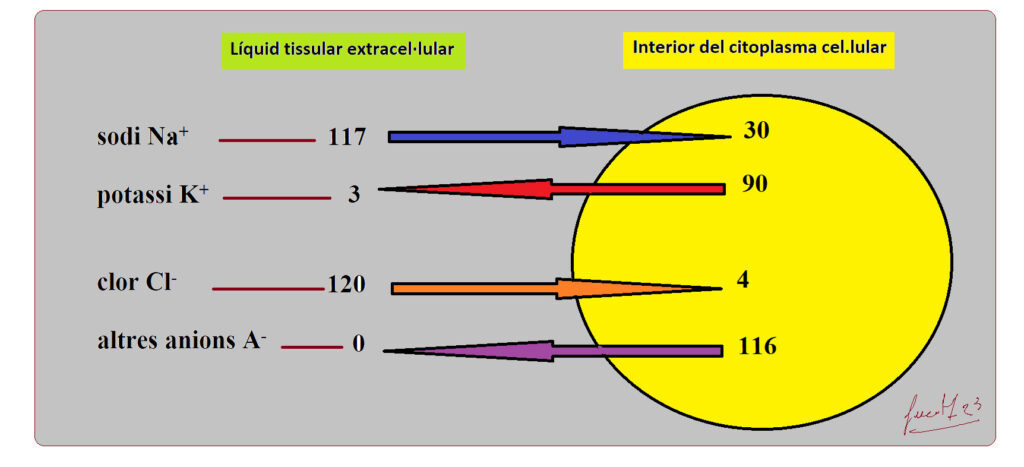
Figura 52. Gradients de concentració (mil·limols) dels ions més rellevants en la funció de la membrana cel·lular. Gradients produïts especialment per l’activitat de la bomba de sodi-potassi. Les fletxes indiquen la direcció que seguiria el flux dels ions si s’obrissin portes (canals) per on poguessin travessar. Imatge del llibre “Per què les neurones” de J. Tomàs, Edicions de la Universitat de Barcelona, Col·lecció Catàlisi, 2024.
L’equilibri elèctric i osmòtic dels ions entre dintre i fora de l’aïllant membrana cel·lular, és una situació a la qual ens ha portat principalment la bomba de sodi-potassi i es podria mantenir indefinidament si la membrana cel·lular fos impermeable als ions (al marge de la translocació produïda principalment per la bomba). La membrana no és, però, impermeable perquè, com hem comentat abans, durant l’evolució de les cèl·lules eucariotes s’han anat diferenciant també i incorporant a la membrana canals iònics diversos que permeten directament el pas d’aquests ions. Quan estudiem els canals en un pròxim capítol, veurem que compliquen l’equilibri iònic que hem aconseguit fins aquí en la membrana. A canvi, però, permetran la producció, conducció i transmissió de senyals elèctrics.