
Context
En el capítol anterior hem vist la incorporació d’un àtom de carboni en l’aminoàcid més simple, la glicina, també anomenat glicocol·la. En aquest capítol utilitzarem el carboni i l’aminoàcid glicina per valorar la distància que pot salvar la senyalització neuronal i per reflexionar sobre la primera propietat de les neurones que és la de comunicar senyals de coordinació a distància, com també ho fa l’altre mecanisme de comunicació dels organismes que és la circulació de la sang i de la limfa.
Aquí tenim un dels àtoms de carboni que ens proposem seguir. Ja el tenim incorporat en una molècula orgànica del aminoàcid glicina. Podria ben bé ser el carboni central de la molècula de la figura 47 en el capítol anterior. En quines condicions, però, aquest carboni s’ha incorporat a la molècula de glicina? Podem dir que no coneixem el mecanisme concret entre els possibles. Es diu que alguns ingredients de la vida van sorgir en l’espai i van arribar a la Terra a través de l’impacte de meteorits i cometes. Potser aquest és el cas! De fet, en 2009 la NASA va confirmar la presència d’aquesta molècula en el cometa Wild 2 gràcies a les mostres obtingudes per la sonda Stardust. La mateixa glicina podria també haver-se format ja en l’atmosfera de la Terra prebiòtica rica en metà, amoníac, aigua i hidrogen i amb una gran quantitat de radiació solar i llamps. Alguns experiments han confirmat que es poden obtenir compostos orgànics com la glicina en aquestes condicions.
També podria ser que la nostra glicina fora sintetitzada a partir d’altres aminoàcids com la serina en un conjunt de complexes reaccions de síntesi que realitzen totes les cèl·lules actuals i que no és raonable descriure aquí. En aquest darrer cas, el carboni format en un estel d’una generació estel·lar anterior, ja en la Terra formant CO2, podria haver estat captat inicialment per una planta per produir hidrats de carboni, i algun d’aquests sucres, com la glucosa, captat amb els aliments i utilitzat en el metabolisme d’un dels protagonistes humans de la història.
En aquest punt, una neurona motora de la medul·la espinal podria haver capturat la glucosa circulant i, amb el seu metabolisme transformar-la en l’aminoàcid glicina. En un pas més, i donada la gran necessitat d’aminoàcids per produir i renovar les proteïnes neuronals, podem imaginar que la nostra glicina ha estat incorporada a una de les subunitats proteiques d’un canal de calci. Un canal de la varietat de canals sensibles a modificacions ràpides del potencial elèctric de la membrana neuronal i del que ja veurem com treballa més endavant juntament amb altres canals iònics. Altres molècules de glicina de la mateixa quinta que l’anterior podríem imaginar també que han estat incorporades en altres molècules rellevants per a la funció d’aquesta neurona, per exemple a un parell de bombes iòniques i a algun transportador de molècules i ions.
Les neurones tenen molta feina produint tota mena de molècules constantment perquè són cèl·lules molt grans generalment i, de tant treballar quasi sense parar, han també de renovar-se. Han de renovar totes aquelles molècules que, en concloure la seva vida útil, es trenquen o disminueixen la seva eficàcia degut a canvis de conformació que degraden la seva funció i s’han de canviar. El seguiment d’aquest àtom de carboni que forma part d’una molècula de glicina incorporada, com un aminoàcid més, en un canal de calci (canal produït en el cos neuronal i que viatjarà cap a una de les terminacions per fer la seva feina en la secreció de neurotransmissor), ens permetrà veure la magnitud de la grandària de les neurones, en particular d’una neurona motora que, en aquest cas i també més endavant ens servirà d’exemple. De fet, veurem ara el primer pas en la construcció del sistema nerviós, és a dir, salvar grans distàncies amb la finalitat d’optimitzar la comunicació per coordinar les parts dels organismes i la seva complexitat (vegeu també el capítol 1 de la Secció I d’aquesta web).
La importància de comunicar senyals a distància
Anem a seguir els nostres carboni i glicina formant part d’un canal de calci produït per una neurona motora de la medul·la espinal des de el cos neuronal a una terminació neuromuscular. En els inicis de l’evolució dels organismes pluricel·lulars, algunes mutacions, potser en la part del genoma relacionat en les molècules del citoesquelet, entre d’altres, varen portar a la producció de prolongacions allargassades en algunes cèl·lules. La proteïna “tubulina” és un heterodímer format per les subunitats α i β, que polimeritzen construint els microtúbuls els quals al seu torn formen el citoesquelet de les cèl·lules. Actualment, s’ha pogut veure que mutacions en els gens que codifiquen la tubulina beta fan que s’inhibeixi fortament el transport axonal d’orgànuls, de vesícules i mitocondris per l’interior de les neurones. Es produeixen també defectes en els feixos de les fibres nervioses i degeneració dels axons motors i sensorials. Sembla doncs que la relació entre el citoesquelet de tubulina i la formació de les prolongacions neuronals inicials sembla força clara.
Les prolongacions de les neurones actuals ens fan pensar en un aspecte cel·lular monstruós, aràcnid, amb moltes potes, el que de ben segur va permetre a aquestes cèl·lules arribar més lluny per relacionar-se amb altres cèl·lules distants. Les cèl·lules epitelials (que estan en l’origen embriològic de les neurones), solament es relacionen directament amb les veïnes, i, en canvi, les neurones ja sabem com connecten llocs distants. La diferenciació morfològica, histològica, per recórrer distàncies pot estar a l’origen del sistema nerviós, juntament amb la sofisticació dels canals iònics que valorarem en capítols següents.
Però de quines distàncies estem parlant? Les dimensions microscòpiques no són evidents en el nostre dia a dia i costen d’imaginar. Per exemple una neurona motora en la medul·la espinal lumbar que controla l’activitat motora voluntària del múscul flexor d’algun dels dits del peu fa 70 micròmetres de diàmetre. La prolongació axonal, d’aquesta neurona motora es dirigeix cap al peu per una cama que fa un metre en moltes persones. Si ara imaginem que fem créixer la neurona 1000 vegades fins a 7 centimetres de diàmetre (com una pilota de tenis), la longitud del seu axó (el metre que fa el seu axò) passa a ser d’un Km.
Una petita bola envia un cable a un Km per controlar el moviment d’uns quants petits tubs musculars!
Al llarg de l’evolució, una vegada aconseguides llargues prolongacions cel·lulars, ha estat necessari aconseguir també, de forma simultània, mecanismes que permetin i sostinguin aquesta extraordinària estructura comunicativa. Ha estat necessari perfeccionar mecanismes de guia del recorregut inicial de les prolongacions neuronals i de reconeixement del destí o de les cèl·lules diana.
Càlculs geomètrics simples diuen que el cos esfèric de la motoneurona, sense comptar les dendrites, té un volum de 180 x 103 micròmetres cúbics mentre que el volum de l’axó cilíndric, d’un diàmetre de 10 micròmetres i sense comptar les ramificacions finals és de 78 x 106 micròmetres cúbics.
Així,doncs, el cos de la neurona ha de permetre el creixement, mantenir i renovar l’estructura i les molècules d’un axó que té un volum mínim de 433 vegades més gran que ella mateixa i ha de disposar de la maquinària de síntesi per produir constantment molècules de tota mena.
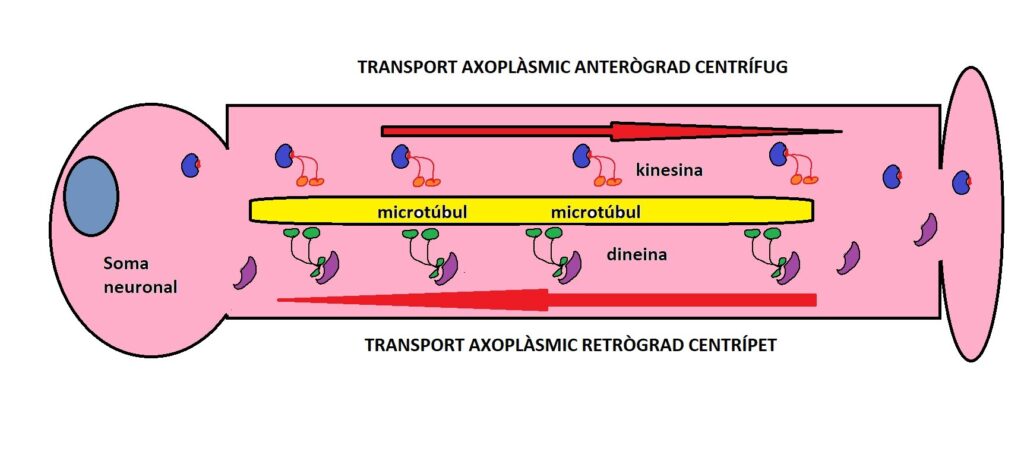
Figura 49. Transport axoplasmic. Imatge modificada del llibre “Per què les neurones” de J. Tomàs, Edicions de la Universitat de Barcelona, Col·lecció Catàlisi, 2024.
A la vegada, les molècules produïdes s’han de poder distribuir per les extenses prolongacions amb mecanismes de transport anterògrad dirigit a les terminacions distants i retrògrad des de les terminacions cap al soma (figura 49). Els motors de cinesina, situats en el soma, es fixen en la membrana de vesícules carregades de materials i es desplacen de forma anterògrada a 300 micròmetres per segon. El motor dineïna fa el recorregut contrari, retrògrad, a uns 200 micròmetres per segon. Entre una hora en sentit anterògrad i una hora i mitja en sentit retrògrad es pot dur a terme la comunicació dels extrems de la motoneurona lumbar que venim analitzant, contribuint al manteniment d’aquesta estructura tan gran.
El nostre carboni que ha pogut passar per una etapa de gas amb l’oxigen formant CO2, incorporat després per un vegetal en una molècula de sucre i finalment metabolitzat en un aminoàcid i en una proteïna en un organisme animal, ara pot ser desplaçat amb un mecanisme de transport axoplàsmic anterògrad, des del soma de una neurona cap a una terminació sinàptica distant. La molècula de la qual, hem suposat, que en forma part, un canal de calci sensible a modificacions del potencial elèctric de la membrana neuronal esdevindrà un dels principals protagonistes per introduir velocitat i plasticitat en la senyalització neuronal que és una comunicació de base elèctrica.
Acabem de veure que la velocitat amb el transport axoplàsmic és d’unes desenes de micròmetres per segon mentre que la velocitat de la circulació sanguínia pel entramat laberíntic dels vasos capil·lars es mou en l’ordre de pocs centímetres per segon. Les prolongacions neuronals permetran comunicar informació en l’escala de metres per mil·lisegon gràcies a la utilització de canals com el de calci, que tot just s’acaba de transportar, i de gradients d’ions a costat i costat de les membranes cel·lulars.
La coordinació en els organismes pluricel·lulars més complexos ha de ser molt ràpida per permetre la supervivència i la duració de llargues vides per l’aprenentatge, la memòria i el pensament intel·ligent que sembla ser la finalitat més interessant de tot això.