Context
Veurem aquí com el ferro captat per un organisme (potser l’homínid que acabem de veure en el capítol anterior), s’incorpora en una molècula d’hemoglobina destinada a transportar gasos per a la respiració i metabolisme de totes les cèl·lules. També veurem com l’hemoglobina incorporada en una cèl·lula transportadora, un hematíe o eritròcit, circula durant quatre mesos per fer, repetidament, la distribució de l’oxigen i la recollida de l’anhídrid carbònic.
El moll dels ossos, l’hemoglobina i distribució d’oxigen
Què hi fa el ferro portat per la transferrina en la cresta ilíaca? En el moll de l’os hemopoètic es formen totes les cèl·lules de la sang, els glòbuls vermells o eritròcits (transportadors de gasos) i els blancs o leucòcits (cèl·lules defensives), també les plaquetes que són definitives per taponar discontinuïtats de la paret dels vasos sanguinis (figura 37).
La transferrina circulant que porta el ferro, és captada per les cèl·lules reticulars que constitueixen l’entramat bàsic del teixit i que tenen grans malles o espais buits entre les seves prolongacions. Les cèl·lules i els espais entre elles, formen una xarxa, ben plena de les cèl·lules sanguínies en formació. Totes les cèl·lules de la sang tenen el mateix origen comú, les cèl·lules pluripotencials indiferenciades o hemocitoblasts que atenen senyals rebuts dels sistemes de regulació de l’organisme i produeixen les cèl·lules que fan falta, ara unes, ara les altres o totes a l’hora.
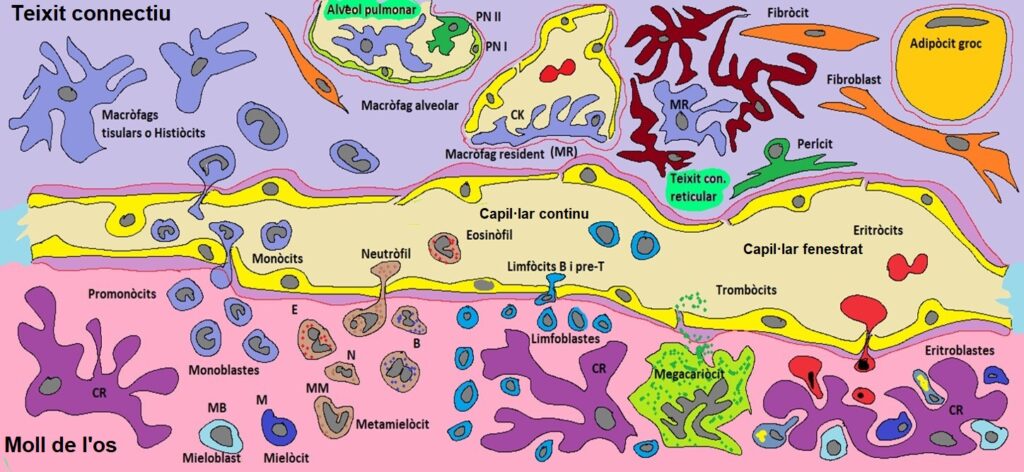
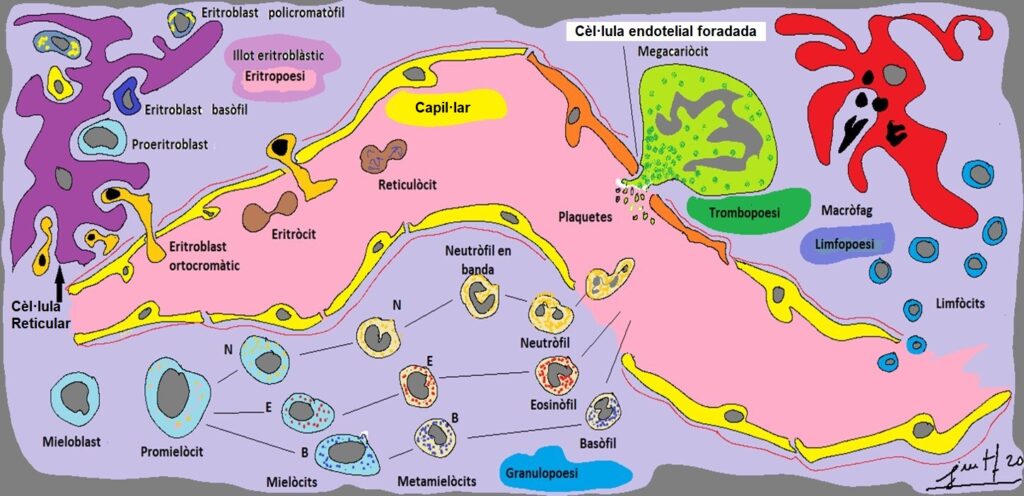
Figura 37. Moll de l’os hemopoètic (composició de dos dibuixos diferents). La medul·la òssia hemopoètica es localitza en l’interior dels ossos de l’esquelet axial. En els altres ossos la medul·la està ocupada per teixit adipós groc. És un teixit reticular (connectiu lax, amb una base de cèl·lules estrellades que formen una xarxa tridimensional, d’aquí el nom del teixit), molt vascularitzat amb abundants capil·lars i sinus venosos irregulars (sinusoides).
En els espais entre les cèl·lules reticulars s’allotgen les cèl·lules hemopoètiques. Totes es formen a partir d’una cèl·lula mare pluripotencial (Hemocitoblast) que respon amb la producció d’una línia o una altra segons els missatgers (interleucines) que detecta (produïdes localment o distalment) per les cèl·lules que regulen la producció de sang (per exemple els limfòcits). La línia de proliferació i diferenciació eritroblàstica (eritropoesi) produeix eritròcits a partir d’un Proeritroblast. La granulocitopoesi produeix granulòcits dels tres tipus (neutròfil, eosinòfil i basòfil) a partir d’un Mieloblast. En la línia que produeix granulòcits neutròfils també es poden diferenciar Monoblasts i monòcits (monocitopoesi). La limfopoesi produeix Limfoblasts i limfòcits B i pre-T. Les plaquetes es formen pel trencament del citoplasma d’un gran Megacarioblast (trombocitopoesi). N, neutròfil; E, eosinòfil; B, basòfil. La monocitopoesi produeix monòcits que en passar a la circulació sanguínia i circular, s’instal·len en els teixits com a macròfags fagocítics (histiòcits) residents o mòbils. En els capil·lars hepàtics (cèl·lules de Kupffer), dintre dels alvèols pulmonars, en els òrgans limfoides, en el teixit nerviós (micròglia), per tot el teixit connectiu. Formen el Sistema reticuloendotelial (SRE) o Sistema mononuclear fagocític (SMF) amb funcions fagocítiques defensives i presentadores d’antígens. (MR), macròfag resident; (CK), cèl·lula de Kupffer; PN I i II, pneumòcits. Dibuixos que formen part del llibre: “Dibuixos d’Histologia. La histologia en cent dibuixos per a la pissarra”, JM Tomàs, Col·lecció eina, Publicacions de la URV, 2025.
Quan el que s’ha d’anar mantenint és la capacitat de transportar oxigen, els hemocitoblasts produeixen cèl·lules precursores dels eritròcits, els eritroblasts, que proliferen i en recuperar el ferro emmagatzemat temporalment en les cèl·lules reticulars (aquestes retenien a la transferrina i al mateix ferro formant un complex anomenat hemosiderina), produeixen hemoglobina amb dedicació exclusiva o quasi. Així, al cap d’una setmana, els eritroblasts, fills d’aquest procés de proliferació i diferenciació, entren a dintre dels vasos sanguinis capil·lars del moll de l’os, deixant enrere pràcticament tota la maquinària cel·lular, nucli inclòs, per esdevenir els glòbuls vermells. Aquests elements són realment sacs d’hemoglobina transportadora d’O2 i CO₂ que circularan permanentment fent aquesta funció durant cent vint dies abans d’envellir esgotats i ser destruïts. Això té lloc en un òrgan que fa de filtre en la circulació de la sang, la melsa, els macròfags de la qual poden, després de fagocitar als eritròcits, retenir el ferro, cedir-lo a nova transferrina i així reiniciar la història. De fet, aquest ferro es reutilitza pràcticament tot, moderant molt la necessitat de nou ferro extern de la dieta.
En els pulmons, l’hemoglobina dels eritròcits normals circulants, s’uneix feblement amb l’oxigen arribat als alvèols durant la inspiració i es forma oxihemoglobina; a través de la vena pulmonar i el sistema arterial, la sang transporta l’oxihemoglobina fins al conjunt de les cèl·lules del cos, on es dissocia altra vegada en hemoglobina i oxigen, cosa que farà possible la respiració cel·lular. Després la mateixa hemoglobina s’associa al diòxid de carboni provinent del metabolisme cel·lular per formar la carbohemoglobina, que a través del sistema venós i l’artèria pulmonar farà cap als pulmons altra vegada, on es dissociarà en hemoglobina i diòxid de carboni. Aquest diòxid de carboni s’expulsarà a l’exterior abans de començar un nou cicle de l’hemoglobina i de l’eritròcit que la transporta, una nova volta completa.
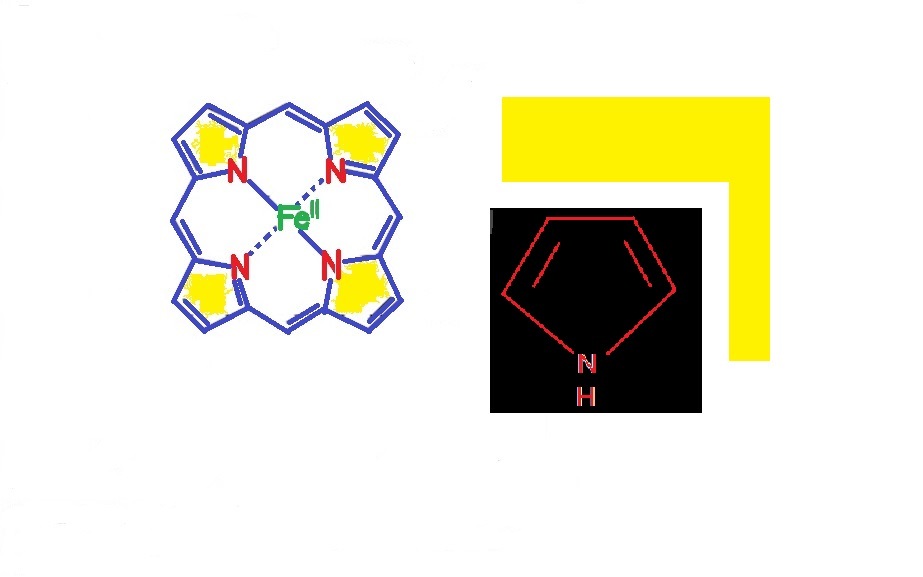
Figura 38. Anell tetrapirrol (esquerra) o grup hemo, component bàsic de les porfirines, portador d’un àtom de ferro, i que està format per quatre grups pirrol (un grup d’aquests està representat a la dreta). Un grup pirrol és una molècula cíclica de cinc àtoms de carboni amb un àtom de nitrogen, i forma part de substàncies de gran interès biològic, com els pigments biliars, l’hemoglobina i la clorofil·la. Els tetrapirrols contenen quatre anells pirròlics. Els quatre anells estan interconnectats amb un pont de carboni sigui en forma linear o cíclica.
Una molècula d’hemoglobina està formada per dues parelles de subunitats proteiques quasi idèntiques, les globines, disposades l’una vers l’altra com els vèrtexs d’un tetràedre. Les dues cadenes α tenen cadascuna 141 residus d’aminoàcid, i les β en tenen 146. Cadascuna de les quatre cadenes conté, unida per forces no covalents, un grup hemo que porta cadascun un ió Fe (II) que pot reaccionar reversiblement amb una molècula d’oxigen. Un grup d’hemo consta d’un catió Fe (II) que s’aguanta en un anell heterocíclic, conegut com a porfirina (figura 38). L’anell de porfirina consta de quatre molècules cícliques connectades juntament amb l’ió ferro lligat al centre. L’ió ferro, és el lloc d’unió amb l’oxigen. Quan no es lliga l’oxigen, una molècula d’aigua unida molt dèbilment omple el lloc. L’oxihemoglobina es forma durant respiració, quan l’oxigen es lliga al component hemo de la proteïna hemoglobina dels glòbuls vermells. Aquest procés ocorre als capil·lars pulmonars adjacents als alvèols pulmonars. L’oxigen viatja a través del corrent sanguini per ser portat a les cèl·lules on s’utilitza en la glucòlisi aeròbica i per la producció d’ATP amb el procés de fosforilació oxidativa (vegeu capítols sobre el fòsfor).
L’estructura de l’hemoglobina és força similar a la d’un altre pigment, la clorofil·la, que conté un àtom de magnesi en comptes d’un de ferro, cosa que fa que el pigment resultant sigui verd en comptes de vermell (vegeu capítol 20). La fotosíntesi es basa en la clorofil·la mentre que la respiració dels vertebrats es basa en els grups hemo -en té quatre com hem dit- per cada molècula d’hemoglobina.
Parlarem una mica ara de l’eritròcit que porta la molècula d’hemoglobina amb l’àtom de ferro que hem seguit. La seva història com a portador d’aquest àtom de ferro tan antic i amb un origen estel·lar tan fantàstic comença el dia que un senyal provinent dels ronyons va arribar al moll de l’os de la cresta de l’os ilíac de la pelvis. La cresta és aquella part de l’os ilíac que ens toquem al costat del cos i al nivell del melic més o menys. La pelvis està formada per aquest os i dos més que junts tots tres formen com una cassola on s’allotgen els òrgans del ventre, moltes nanses intestinals, primes i gruixudes i la bufeta de l’orina. En la pelvis també s’articulen els fèmurs de les cuixes i la columna vertebral amb l’os sacre. El senyal químic provinent dels ronyons és una molècula anomenada Eritropoetina (estimuladora de la formació d’eritròcits) que s’origina en unes poques cèl·lules situades en el teixit connectiu que allotja capil·lars sanguinis en la part més profunda del ronyó (anomenada medul·la renal), un teixit connectiu-vascular que envolta els tubs que recullen el filtratge del plasma sanguini que s’acabarà convertint en orina. Aquest filtratge es fa en més d’un milió de petits coladors, vasos sanguinis plens de petits foradets que deixen passar la gran majoria de les molècules del plasma, i entre tots dos ronyons es filtren més de 100 litres al dia, cosa que va molt bé per purificar i depurar la sang (vegeu capítol 15). Naturalment, nosaltres no ens podem permetre perdre aquest volum de líquid i de molècules cada dia i pixar 100 litres al dia. Així, la major part d’aigua i molècules filtrades són reabsorbides per les cèl·lules dels tubs de la medul·la dels ronyons que recullen tot aquest filtratge.
Doncs bé, com als dos ronyons hi fa cap, per les respectives artèries renals la cinquena part de tota la sang que surt del cor en cada batec, i això facilita la depuració molt eficaç de les substàncies inconvenients, també és un lloc estratègic per poder valorar la quantitat d’oxigen que porta la sang. Així doncs, en la medul·la dels ronyons hi ha les cèl·lules que detecten el nivell d’oxigenació sanguini. En realitat l’oxigen que porten els eritròcits durant el pas per aquest lloc estratègic.
Quan fa falta més oxigen, aquestes cèl·lules produeixen l’hormona Eritropoetina que en acabar sortint per les venes renals i seguir el recorregut de la circulació sanguínia, arriba al moll de tots els ossos, i en particular als que tenen en l’interior (la medul·la òssia) teixit hemoformador i així poder estimular en aquests llocs la producció d’eritròcits. Com no es pot garantir normalment la recepció de més oxigen exterior, ja que no depèn dels organismes, la millor estratègia és la d’incrementar la quantitat de cèl·lules que porten hemoglobina i oxigen per garantir la millor oxigenació dels diferents teixits de l’organisme. És una estratègia de llarga durada i que porta dies. Ara bé, si en un moment determinat de gran esforç, posem per cas una cursa, falta oxigen, el sistema nerviós ho detecta amb els seus propis sensors i pot augmentar ràpidament la profunditat i freqüència de les inspiracions que és l’altra estratègia immediata per aportar oxigen a les cèl·lules.
El fet és que en poques hores de diferència han pogut arribar al moll de l’os de la cresta ilíaca, algunes molècules de transferrina, una d’elles amb el nostre ferro i també una certa quantitat d’Eritropoetina. Tot plegat els necessaris elements per promoure la producció de nous eritròcits (a banda, naturalment d’una mínimament correcta nutrició que subministri els també necessaris aminoàcids i vitamines com la B12). Com hem vist, la transferrina amb el ferro és captada per algunes de les cèl·lules que formen la xarxa bàsica, la matriu del teixit del moll de l’os. Una xarxa cel·lular de cèl·lules reticulars. Són cèl·lules grollerament estrellades i que contacten amb les veïnes pels extrems de les seves prolongacions per formar una xarxa cel·lular, d’aquí el seu nom com ja hem dit. De fet, són cèl·lules connectives en origen i que en els grans espais entre les seves prolongacions allotgen a les cèl·lules productores de totes les de la sang (vegeu figura 37). Són els Hemocitoblasts o cèl·lules mare, i tota la seva progènie d’eritròcits, plaquetes i leucòcits variats. De fet, aquest ferro que acaba d’arribar i ha estat captat, no era veritablement imprescindible ara mateix perquè les cèl·lules reticulars van emmagatzemant sempre ferro en excés, si és que n’hi ha, per tenir-lo sempre disponible, inclús el que procedeix del trencament dels eritròcits envellits i eliminats i que és reaprofitat. L’eritropoetina ha estat rebuda per alguna cèl·lula mare i l’ha estimulat perquè proliferi i es diferenciï, es transformi en eritròcits. La cèl·lula mare es divideix en poques hores i, naturalment, una de les dues filles resultants resta com a cèl·lula mare perquè no s’esgoti la reserva d’aquests elements tan importants, fonamentals per a la formació de la sang. L’altra cèl·lula resultant de la divisió entra en el procés de produir 16 eritròcits que implicarà almenys quatre divisions consecutives dels seus fills durant una setmana i una gran transformació amb la massiva producció d’hemoglobina i pèrdua de nucli i orgànuls per esdevenir un sac rodó i aplanat que podrà viure quatre mesos circulant.
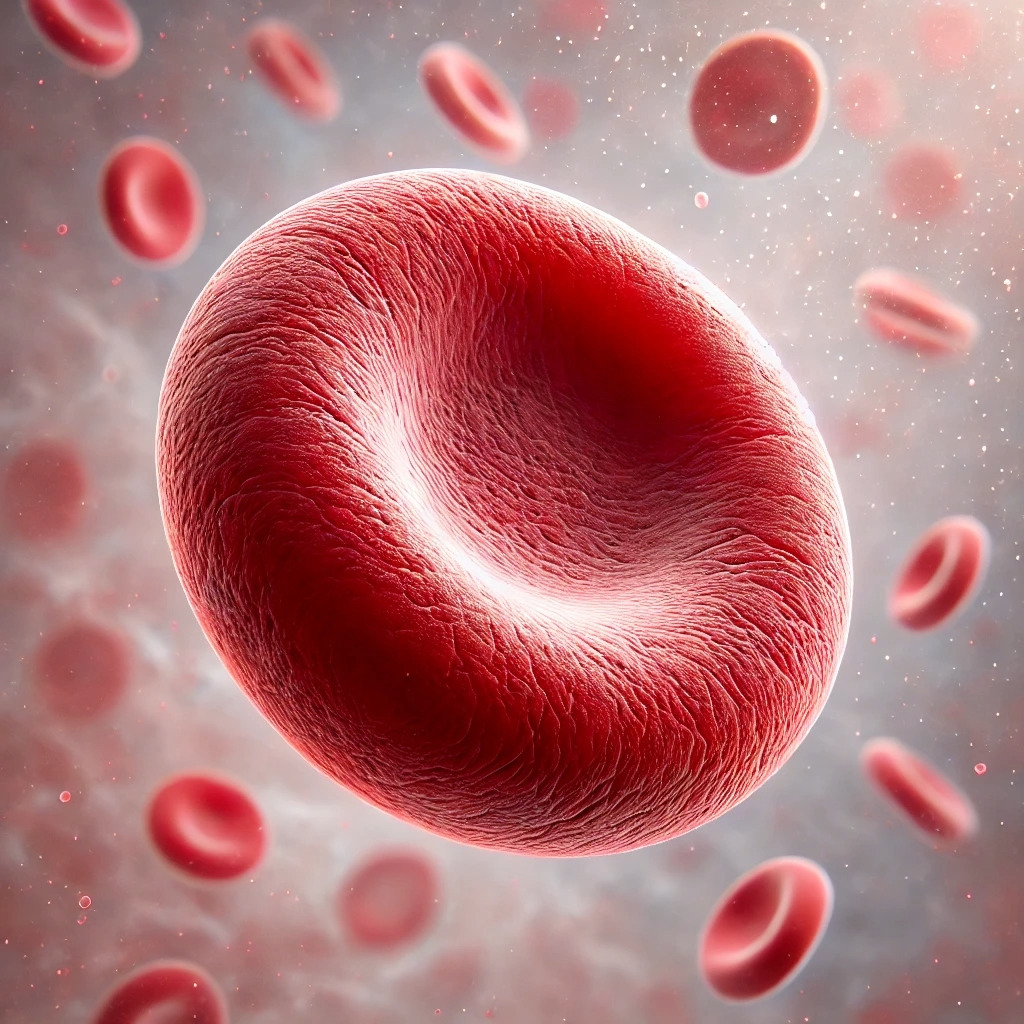
Figura 39. Eritròcits circulant. Imatge creada pel ChatGPT.
Un dels primers passos perquè tot això tingui lloc és l’íntima associació de l’hemocitoblast que proliferarà amb una cèl·lula reticular, amagat en un replegament de la seva superfície, una mena de butxaca on se li podrà subministrar totes les molècules necessàries i específiques, fins i tot el ferro, per a la transformació. Totes les 16 cèl·lules resultants del procés de proliferació romandran allotjades en plecs del cos de la cèl·lula reticular nodrissa formant una unitat. En concloure el programa de diferenciació dels eritroblasts, aquests darrers deixen la seva cèl·lula, nodrissa i moguts en gran manera per la pressió de totes les cèl·lules sanguínies que en gran nombre s’estan produint constantment en els intersticis del moll de l’os, són portats a travessar la paret de vasos capil·lars entre les cèl·lules epitelials, endotelials, que formen aquests conductes per entrar en el corrent sanguini. En aquest pas perden el nucli i diferents orgànuls.
Ara ja tenim l’element transportador, l’eritròcit (figura 39) que porta el ferro que hem seguit des de les estrelles primeres. Cada eritròcit, després de trencar-se per passar a l’interior dels capil·lars sanguinis, torna a tancar la seva membrana i restitueix els gradients iònics amb el funcionament de les bombes adequades, i adopta finalment la ben curiosa forma de disc bicòncau que serà mantinguda per una peculiar disposició dels filaments del seu citoesquelet de proteïnes filamentoses estructurals i contràctils que tiben de la membrana. Aquesta curiosa forma facilita que cada molècula d’hemoglobina en suspensió en el citosol dintre de l’eritròcit, disposada a oferir el seu ferro per a la captació i transport d’oxigen i diòxid de carboni, no estigui tan allunyada de la membrana, de la superfície cel·lular, com hi estarien moltes molècules en una cèl·lula circulant que fora esfèrica (les molècules del centre de l’esfera). Una forma més o menys esfèrica sí que la solen mantenir els leucòcits circulants i solament s’aplanen com a ous aferrats quan s’acosten a la paret dels capil·lars i vènules per, en travessar-los, passar als teixits en la seva funció defensiva.