
Context
Una vegada aconseguit un gradient de sodi-potassi durant l’evolució cel·lular, aquest serà utilitzat per una varietat de molècules transportadores que permeten un intercanvi fluid i força eficaç d’ions i molècules entre l’interior i exterior de les cèl·lules. Molts d’aquests mecanismes són electrogènics en la mesura que amb el transport i cotransport de partícules carregades, es forma també un cert gradient elèctric, juntament amb el de concentració o químic, a costat i costat de la membrana cel·lular. Aquest gradient elèctric crea una diferència de potencial elèctric transmembrana que no és massa gran (ja hem vist que el creat per la bomba de sodi és d’uns 6 mil·livolts, i el produït per l’intercanviador sodi-calci encara menys).
Durant l’evolució també es van produir, possiblement al mateix temps que bombes i transportadors, canals iònics que, en deixar passar aquestes partícules, en gran quantitat i ràpidament varen permetre la generació de corrents elèctrics. Aquests corrents podien ser utilitzables per a la recepció, integració, conducció i transmissió de senyals ja no sols a distància sinó també a gran velocitat per algunes prolongacions neuronals. Alguns d’aquests canals van permetre el pas de sodi, com no podia ser d’altra manera donada la rellevància que veiem que va tenint aquest element.
Canals iònics
Cada ió dels que es troben en cèl·lules i teixits té el seu propi gradient transmembrana construït en gran part, com hem vist, per bombes i transportadors. Per formar corrents iònics ràpids i intensos, que puguin emprar-se per senyalitzar, s’han d’obrir vies entre dintre i fora de la membrana cel·lular. Aquestes vies són els canals iònics (figura 55). A més a més, els mateixos canals contribuiran a optimitzar els gradients dels ions.
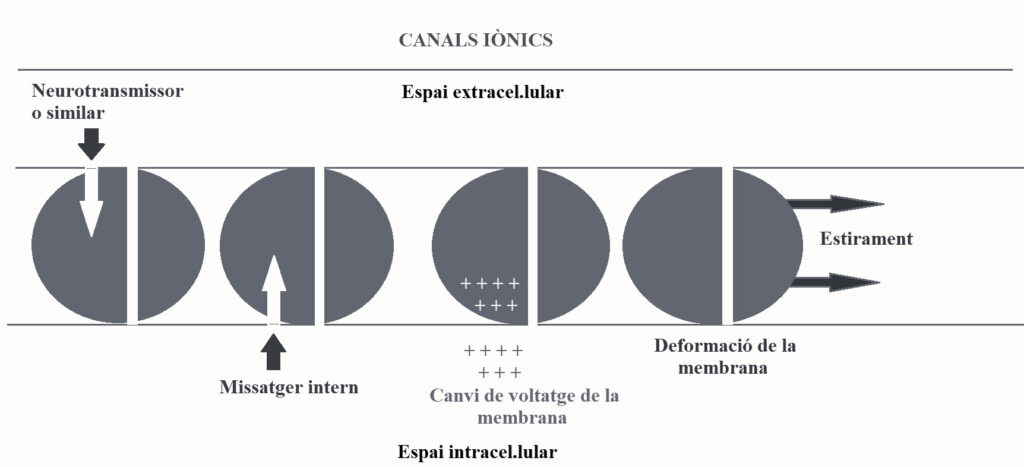
Figura 54. Representació dels quatre principals tipus de canals iònics . Cadascun dels tipus és activat per estímuls diferents. Imatge del llibre “Per què les neurones” de J. Tomàs, Edicions de la Universitat de Barcelona, Col·lecció Catàlisi, 2024.
Les molècules dels canals iònics són proteïnes que travessen tot el gruix de la membrana cel·lular. En alguns llocs rellevants, poden ser milers de molècules o solament unes quantes barrejades amb receptors diversos, enzims i molècules d’ancoratge.
La superfície dels canals és lipofílica i això els permet quedar englobats en la membrana cel·lular lipídica. També tenen un porus central (delimitat per aminoàcids hidrofílics) que allotja una “porta” que pot estar oberta o tancada, o bé fluctuar entre un estat i l’altre en resposta a l’agitació tèrmica i altres influències de l’entorn i, per tant, podem dir que els canals tenen normalment una certa probabilitat d’obertura (o de tancament), que pot augmentar o disminuir quan són activats. També tenen una regió en el porus anomenada “filtre de selectivitat”, que és la que deixa passar uns ions o uns altres. Aquest filtre pot ser molt específic, deixant passar bàsicament un sol ió o bé menys selectiu, deixant passar normalment diversos ions, com per exemple, alguns canals en les sinapsis que són permeables a tots els cations, amb diferent estequiometria, però.
Segons el mecanisme d’activació, els canals poden ser sensibles a canvis sobtats en la distribució de càrregues elèctriques a costat i costat de la membrana, és a dir sensibles al voltatge transmembrana. Seguint amb la nostra argumentació sobre la implicació d’alguns elements en la complexitat creixent de matèria i vida, tot seguit parlarem d’un canal de sodi que permetrà la velocitat en la comunicació de senyals elèctrics a distància per les neurones i les cèl·lules musculars.
Altres canals són sensibles a la deformació mecànica que estira i tiba de la membrana on estan situats, per exemple en terminacions nervioses sensibles a totes les variants del tacte. Altres canals són sensibles a agents externs, és a dir, alguna molècula que hi contacta des de l’exterior com els neurotransmissors alliberats en les sinapsis i així porten incorporat el receptor per a l’agent extern i, sovint, s’hi fa referència com a canals o com a receptors de forma indistinta. Finalment, altres canals són sensibles a agents intracel·lulars, és a dir, molècules originades en l’interior de la cèl·lula que, en accedir a la boca interna del canal, en modifiquen la probabilitat d’obertura.
Canals de sodi sensibles al potencial de membrana i conducció de senyals.
En aquests darrers capítols veiem la formació, durant l’evolució, de molècules proteiques que actuen com a bombes, com a transportadors i com a canals, i ens hem centrat en aquelles que treballen amb els ions de sodi que juguen el principal paper en la comunicació a gran velocitat entre les cèl·lules. La membrana de les prolongacions axonals neuronals allotja un rosari de canals de sodi força específics per aquest ió, i que són sensibles al voltatge transmembrana (canals de sodi sensibles al voltatge, CSSV). Quan el primer (o primers) CSSV, en l’inici de l’axó detecta una fluctuació ràpida del nombre de càrregues positives en la cara interna del canal (fluctuació ocasionada perquè arriben moltes càrregues des de la resta de la neurona quan aquesta és activada per terminacions nervioses que provenen d’altres neurones i llocs) augmenta la seva permeabilitat i entra sodi seguint el seu gradient. El sodi entra perquè la bomba de sodi l’ha estat i l’està traient constantment i en quedar més concentrat a fora de la membrana entra més que no pas surt pel canal seguint també l’agitació tèrmica de l’entorn.
Aquesta entrada inicial de sodi actua sobre el següent (o següents) CSSV que és impel·lit a repetir el procés, i així s’estableix una cadena que conclou en arribar a les terminacions axonals, sovint ben lluny de l’inici de l’axó. Tants canals de sodi consecutius com hi hagi al llarg de l’axó repetiran el procés fins a arribar al que podríem anomenar darrer canal, en l’avantsala de totes i cadascuna de les terminacions de l’axó quan contacten i fan sinapsis sobre altres neurones de la xarxa, tot plegat a una velocitat que pot arribar a 400 km/h.
Abans de veure com prossegueix aquest procés, hem de dir, però, que aquesta primera molècula del canal de sodi ha d’inactivar-se ràpidament per poder iniciar una nova conducció si es dona el cas. La inactivació rapidíssima consisteix en el fet que el mateix canvi de conformació del canal impulsa l’extrem citoplasmàtic carboxílic de la proteïna com una volejadora dels gautxos (llaç amb boles) que tanca la boca interna del canal quedant aquest inactivat temporalment.
Com ja hem vist anteriorment, la bomba de sodi anirà a poc a poc traient el sodi que ha entrat, encara que, per anar molt més ràpid i no alentir ara la gran velocitat aconseguida inicialment, farà falta un altre mecanisme que deixi el canal de sodi en la seva posició inicial i a punt de tornar a actuar ràpidament. En el pròxim capítol (38) estudiarem aquest mecanisme que serà suportat per ions de potassi. El sodi i el potassi treballant conjuntament (com ja hem vist que també ho fan acoblats per fer funcionar la bomba de sodi-potassi) permeten la ràpida senyalització neuronal.
El canvi de potencial que es va produint al llarg de l’axó quan s’activa el rosari de CSSV s’anomena potencial d’acció, en oposició a la conducció passiva de corrents elèctrics en les sinapsis (que veurem més endavant), i és de conducció automàtica: quan s’origina, ja no para ni s’esmorteix amb la distància, ja que és renovat automàticament en cada molècula dels CSSV consecutius. Aquest mecanisme permet una conducció ràpida i segura del senyal o grups de senyals originats en el con axonal, en l’inici de l’axó de cada neurona.
Per optimitzar la velocitat, les llargues prolongacions neuronals estan envoltades per cèl·lules glials, oligodendròcits en el sistema nerviós central i cèl·lules de Schwann en els nervis del sistema nerviós perifèric. El conjunt format per una prolongació neuronal de llarg abast i les cèl·lules glials que l’acompanyen s’anomena fibra nerviosa. Normalment, cada cèl·lula glial dona voltes repetidament l’una damunt de l’altra, sobre la prolongació neural en el tros de segment que li pertoca. En aquest procés, es fusionen les cares externes de les membranes cel·lulars contigües en les voltes consecutives i també les cares internes de la membrana (no oblidem que les membranes cel·lulars estan formades per dues capes lipídiques, interna i externa).
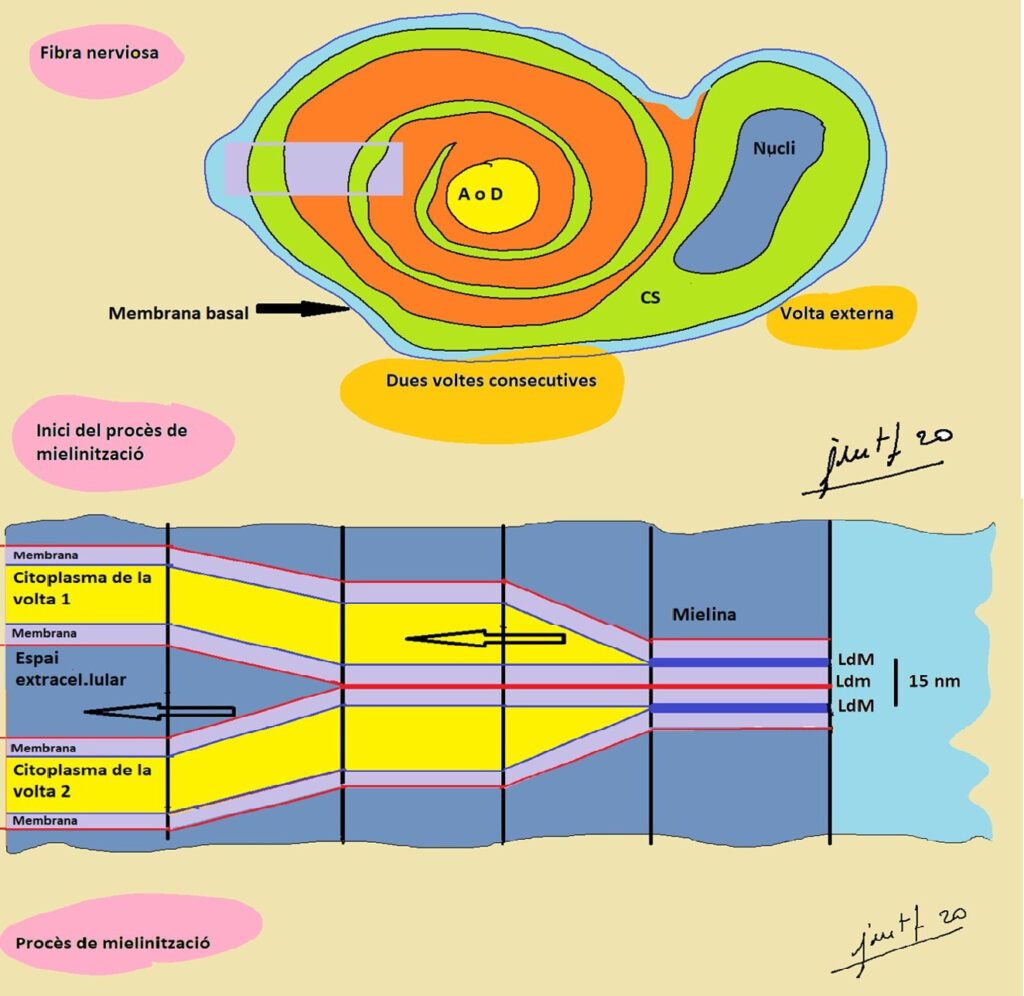
Figura 55. Una fibra nerviosa està formada per una prolongació axonal (A, senyalització centrífuga des del soma) o bé dendrítica (D, conducció centrípeta), sovint indistingibles morfològicament, amb canals iònics sensibles al voltatge (condueixen potencials d’acció) i que estan associades a cèl·lules glials que les envolten, les aïllen elèctricament i les mantenen. Les cèl·lules glials són els oligodendròcits en el sistema nerviós central, i les cèl·lules de Schwann (CS) en el sistema nerviós perifèric. Les fibres nervioses poden ser mielíniques si envolten repetidament (fins a 100 voltes) una prolongació neural i donen lloc a una estructura anomenada mielina (a la part de dalt de la figura). La mielina (a baix) es forma per l’eliminació pràcticament total de l’espai extracel·lular entre les voltes consecutives de la cèl·lula glial i perquè el citoplasma de les voltes és espremut, desplaçat i segrestat en la darrera (més exterior) volta de la cèl·lula glial, la que conté el nucli i orgànuls. LdM, línia densa major; Ldm, línia densa menor. Dibuixos que formen part del llibre: “Dibuixos d’Histologia. La histologia en cent dibuixos per a la pissarra”, JM Tomàs, Col·lecció eina, Publicacions de la URV, 2025.
El resultat de tot aquest procés és la formació de la mielina, una coberta lipídica i hidròfuga, formada i mantinguda per la cèl·lula glial, que incrementa l’aïllament elèctric de la prolongació neuronal en el tros protegit. Aquest aïllament contribueix a disminuir les pèrdues i els curtcircuits cap a l’exterior dels corrents de sodi que es desplacen passivament per l’axoplasma, controlant alhora la composició iònica extracel·lular i la seva estabilitat per garantir la conducció. En el punt on s’acaba una cèl·lula glial i s’inicia la següent (aquest punt s’anomena Node de Ranvier) és on es concentren majoritàriament els CSSV fent possible separar grups de canals amb una certa distància entre ells. Aquesta distància és la màxima distància en què el corrent de sodi passiu intracel·lular originat en un node arriba al següent node amb la “força” prou per activar els seus canals i així repetir el procé. En les fibres nervioses mielíniques, doncs, la conducció va saltant de node en node de Ranvier (conducció saltatòria) fins al final de cadascuna de les ramificacions de la fibra nerviosa, de forma encara molt més ràpida que si la conducció es fes d’una sola molècula de canal a la molècula contigua.
Així, els protagonistes de la velocitat en la comunicació neural, dintre i fora del sistema nerviós central, són el canal de sodi dependent de voltatge (el CSSV), la seva segregació en grups discrets i l’aïllament glial mielínic. Quan la velocitat pot ser més «moderada» (uns 2 km/h), per exemple en el sistema nerviós de regulació automàtica d’òrgans i funcions vegetatives dels aparells interns, les cèl·lules glials que envolten les prolongacions neuronals no formen mielina (fibres amielíniques).
La importància de la velocitat de comunicació
Una vegada salvades les distàncies més llargues de la comunicació intercel·lular (metres fins i tot) gràcies a la diferenciació morfològica de les neurones, a les seves llargues prolongacions, la comunicació ha de ser ràpida, molt més que l’hora aproximadament del transport intracel·lular axonal de molècules i orgànuls en moltes neurones i més que els segons llargs o minuts del transport vascular d’hormones.
El mecanisme vascular de comunicació té una limitació important que és la gran longitud dels vasos. En una persona s’acosta als 100.000 quilòmetres. També és una limitació la velocitat del flux sanguini, de 33 centímetres per segon en les artèries a 0,3 centímetres per segon en els capil·lars que fan la distribució final a les cèl·lules receptores dels mediadors. Afortunadament, des d’aquest punt de vista, les canonades de la circulació sanguínia estan en sèrie i en paral·lel i un missatger o cèl·lula no ha de seguir tots els kilòmetres de la xarxa. En la pràctica, una hormona com la insulina alliberada des del pàncrees pot tardar algun minut a acostar-se a moltes cèl·lules per indicar-les que poden captar glucosa des de la sang (totes les cèl·lules de totes les parts de l’organisme humà en depenen més o menys). En molts casos, aquest «retard» no té un significat negatiu, si no hi ha pressa i no ve d’un parell de minuts.
En canvi, el mecanisme suportat pel canal de sodi sensible a oscil·lacions en el potencial de la membrana axonal, genera senyals que poden ser conduïts al llarg de l’axó al voltant de 120 metres per segon (400 km/h) en el cas dels axons més gruixuts i més ben aïllats amb mielina. En 9-10 mil·lisegons, un senyal emès per una motoneurona situada en la medul·la lumbar, arriba al múscul del peu al qual innerva, provocant la contracció de les cèl·lules musculars innervades. Una neurona petita en algun nucli del cervell que projecti l’axó de 3 micròmetres de diàmetre a una distància d’un mil·límetre, pot conduir a una velocitat d’uns 30 metres/segon i el senyal podria tardar 33 microsegons a arribar a la neurona diana.
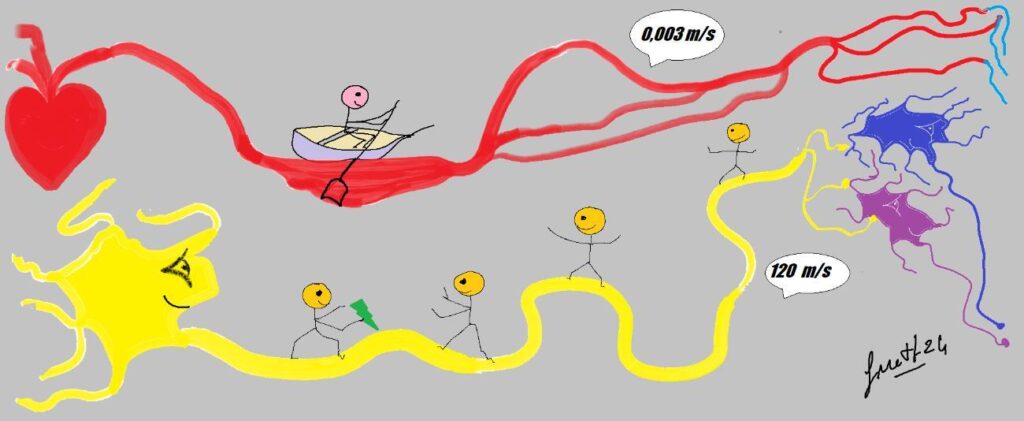
Figura 56. En comparació amb la velocitat de moviment de cèl·lules i molècules (també les senyalitzadores, hormones i citocines) per la circulació sanguínia, la velocitat de senyalització neural és altíssima. Dibuix que també forma part del capítol 2 de la Secció I d’aquesta web.
En la comunicació neural ens movem en l’ordre de pocs mil·lisegons, i no és qüestió ara d’introduir un retardament de segons amb l’exocitosi del neurotransmissor en les sinapsis. En les sinapsis s’ha diferenciat una maquinària molecular específica que garanteix que sempre hi hagi vesícules preparades en les anomenades zones actives, per obrir-se i secretar el neurotransmissor.
Comparativa de velocitats (la llum, els electrons, el corrent elèctric i els senyals neuronals)
La llum (els fotons) viatja molt de pressa, a prop de 300.000 kilòmetres per segon en el buit i quasi això en l’espai (quadre IX). A quina velocitat viatja l’electricitat dins d’un cable de subministrament de corrent, però, per enviar un senyal elèctric? El corrent elèctric en un cable conductor és portat pels electrons, amb càrrega negativa, dels àtoms del material conductor. És el desplaçament dels electrons al llarg del cable el que genera l’electricitat i, la velocitat d’aquest senyal és pràcticament la velocitat de la llum (un 95% d’aquesta aproximadament). Això no obstant, la velocitat que adquireixen els electrons en cables (de coure per exemple) com els domèstics està al voltant d’1 mil·límetre per segon.
Com s’harmonitza aquesta disparitat entre la velocitat dels electrons individuals saltant d’àtom en àtom i la gran velocitat final del senyal al llarg del conductor? Un electró individual forçat a moure’s per l’aplicació d’un camp elèctric (per exemple la connexió a una bateria) en l’inici d’un cable conductor, no recorre tot el cable, sinó que en aparèixer al començament del fil, tots els altres presents en aquest es desplacen cap endavant alliberant a l’últim de la fila. Aquest últim serà el que transmeti el senyal, tan llarg com sigui el cable i la filera d’electrons. És així el comportament dels electrons dins del cable, amb el resultat que la velocitat del corrent en el seu conjunt és similar a la velocitat de la llum.
Quadre IX. Comparativa de velocitats (metres per segon)
Fotons (Llum)………………………………………….300 x 106 m/seg.
Corrent elèctric (cable)……………………………..285 x 106 m/seg.
Electrons (cable)…………………………………………..0,001 m/seg.
Ions (solució)……………………………………………….0,001 m/seg.
Fibra nerviosa (amb CSSV)……………………………30-120 m/seg.
En una solució iònica, són els ions positius i negatius els que es mouen quan s’aplica un camp elèctric (altra vegada una bateria que connecta els pols positiu i negatiu a la solució), cada ió cap al pol de càrrega contrària. En aquest cas, els ions es mouen també a una velocitat aproximada (segons la seva càrrega, concentració, mida, mobilitat, temperatura, etc.) d’un mil·límetre per segon, i sovint alguns micròmetres per segon solament.
Així doncs, la velocitat que aporta a la comunicació neural el mecanisme protagonitzat per l’ió i el canal de sodi CSSV, representa una millora de 120.000 vegades sobre la velocitat estàndard dels ions en les solucions.