
Context
Una vegada aconseguit i mantingut el gradient de sodi-potassi, veurem aquí un dels seus principals avantatges que, convertit en funció de complexitat creixent, permet avançar en el co-transport de molècules i ions cap a l’interior o cap a l’exterior de les cèl·lules segons les necessitats. La bomba de sodi ha permès superar la impermeabilitat de les dobles capes lipídiques de les membranes i ara l’evolució ho aprofitarà per avançar en la millora de les funcions cel·lulars amb la producció de molècules co-transportadores.
Cotransportadors de sodi aprofitant el gradient i altres transportadors.
Ja tenim aconseguida amb el procés evolutiu de matèria i vida la capacitat de formar gradients iònics en les membranes lipídiques, amb una finalitat inicialment poc clara en si mateixa, més enllà de contribuir a la formació d’un mitjà intracel·lular específic i diferent de l’extracel·lular. A partir d’aquest punt es varen desenvolupar diferents mecanismes, basats en l’aprofitament dels gradients, de l’energia que acumulen (que és l’emprada en aconseguir-los), per acomplir diferents funcions cada vegada més ben definides, amb la col·laboració d’altres molècules com els canals iònics. Progressivament, la finalitat d’arribar a la situació actual de formació de neurones per optimitzar els mecanismes de comunicació i coordinació pluricel·lular es va fent evident. Així apareixeran diferents canals permeables al sodi (i a altres ions) i que, generalment, poden deixar moure ions de sodi pel seu porus central, del costat més concentrat en direcció al costat de les membranes en el qual el sodi ho està menys que és l’interior cel·lular (vegeu més endavant quan parlem de canals iònics). En aquest capítol parlarem dels transportadors i més endavant dels canals.
En termes generals en les membranes s’insereixen molècules transportadores d’ions i altres molècules. Molts transportadors utilitzen el gradient de sodi. Els uniportadors són una classe específica de transportadors que podríem considerar relativament senzills. Mouen només un tipus de molècula a favor del seu gradient de concentració i el gradient de sodi no intervé directament. Per exemple, el transportador de glucosa (GLUT) és un tipus de uniportador responsable de la difusió facilitada de les molècules de glucosa (que són força grans) a través de les membranes cel·lulars. Aquest transportador té diverses isoformes, variacions distribuïdes en diferents teixits. Els transportadors de glucosa permeten que les molècules de glucosa passin d’àrees d’alta concentració a àrees de baixa concentració salvant la dificultat de la membrana, el que normalment vol dir, portar glucosa des de l’espai extracel·lular o la sang a les cèl·lules, sense necessitat d’ATP. Quan la glucosa s’uneix al seu transportador, aquest canvia de conformació i interioritza el sucre. Una vegada que la glucosa s’allibera en l’interior de la cèl·lula, la proteïna torna a la seva forma original.
Els cotransportadors representen una classe diferent de transportadors més complexos. Acoblen el moviment favorable d’una molècula que segueix el seu gradient de concentració per desplaçar-se i el moviment desfavorable d’una altra molècula contra el seu gradient de concentració. Permeten el transport (també anomenat transport actiu secundari, perquè utilitza l’energia acumulada en un gradient prèviament constituït).
Els cotransportadors inclouen antiportadors i simportadors (figura 53).
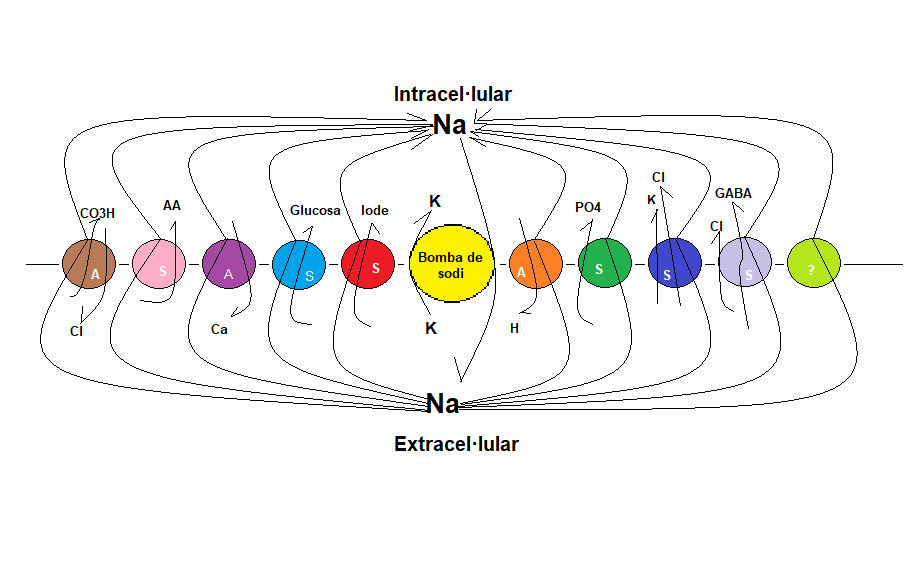
Figura 53. Ions de sodi fluint pels espais intracel·lular i extra, sortint per la bomba de sodi i entrant per diferents cotransportadors (A, antiportadors i S, simportadors). La figura mostra altres exemples a part dels citats en el text, com el cotransportador de protons que regula l’acidesa de l’interior cel·lular i transporta una càrrega positiva en cada direcció essent elèctricament neutre el resultat. Un altre exemple significatiu és el cotransportador de sodi i ions negatius, anions. En aquest cas el transport tampoc és electrogènic donat que acobla l’entrada d’un catió sodi juntament amb dos bicarbonats i la sortida d’un clor.
Els cotransportadors són capaços de moure soluts a velocitats de 103 a 105 molècules per segon. Tant els antiportadors com els simportadors transporten dos o més tipus diferents de molècules al mateix temps en un moviment acoblat. Un moviment energèticament desfavorable d’una molècula es combina amb un moviment energèticament favorable d’una altra o altres molècules o ions per a proporcionar la potència necessària per al transport. Els cotransportadors experimenten un cicle de canvis conformacionals en vincular el moviment d’un ió amb el seu gradient de concentració amb el moviment d’un solut cotransportat contra el seu gradient de concentració. En una conformació, la proteïna tindrà el lloc d’unió (o llocs en el cas dels simportadors) exposat a un costat de la membrana. Després de la unió de les diferents molècules, es produirà un canvi conformacional que exposarà els substrats (les molècules o ions a transportar) al costat oposat de la membrana on es dissociaran quedant lliures.
Els antiportadors usen el mecanisme de cotransport per a moure ions i molècules en direccions oposades. Per exemple, un dels ions es mourà de l’espai extracel·lular a l’espai citoplasmàtic mentre que l’altre ió es mourà de l’espai citoplasmàtic a l’espai extracel·lular. Un exemple d’un antiportador és el bescanviador de sodi-calci que comentarem tot seguit.
A diferència dels antiportadors, els simportadors mouen ions o molècules en la mateixa direcció. En aquest cas, tots dos ions que es transporten es mouran des de l’espai ectoplasmàtic a l’espai citoplasmàtic o des de l’espai citoplasmàtic a l’espai ectoplasmàtic. Un exemple d’un simportador és el transportador lligat a sodi-glucosa (SGLT). El SGLT acobla el transport de sodi (2 ions de sodi) a favor del seu gradient de concentració amb el moviment d’una molècula de glucosa (glucosa i sodi cap a l’interior). Un altre simportador rellevant com a exemple és el de Na+/I− que transfereix iode a la glàndula tiroide. Aquests estan situats en la membrana basilateral de les cèl·lules fol·liculars de la tiroide on s’acoblen 2 ions Na+ i 1 ió I– per a transferir el iodur a l’interior de la cèl·lula amb la finalitat de sintetitzar les hormones tiroidals en les que el iode és el principal component. Així mateix, també una part important de la captació d’aminoàcids per moltes cèl·lules utilitza el cotransport amb sodi juntament amb uniportadors específics.
Així és que en el decurs de l’evolució es varen diferenciar ben aviat molècules transportadores de diferents ions i molècules i molts d’ells aprofiten el gradient de sodi. Es tracta de màquines moleculars configurades com una porta giratòria similar a les que es poden trobar en grans edificis com bancs, hospitals, hotels, etc. En les podríem imaginar, amb un eix central ben greixat, oferint molt poca resistència a una petita empenta donada per alguns ions de sodi des del costat exterior de la membrana, on està més concentrat, empenta que fa girar la porta fins que el o els ions de sodi es desplacen a l’altre costat. En aquest desplaçament també és incorporat al mecanisme algun altre ió o molècula per ser co-transportat amb el mateix sentit que l’entrada de sodi, cap a l’interior cel·lular o en el contrari en diferents classes de co-transportadors.
Un cotransportador especial per nosaltres, ara que volem portar el sodi de les estrelles a actuar en la funció del sistema nerviós, és el transportador sodi-calci (vegeu-lo situat en la figura 53). La seva porta giratòria arreplega un ió calci bivalent (Ca++) intracel·lular mentre que tres ions externs de sodi monovalents voler entrar a favor del seu gradient i així impulsen el mecanisme de translocació. El resultat és l’extracció d’un ió de calci amb dues càrregues positives i l’aportació de tres positives (tres sodis) a l’interior. La suma algebraica d’entrada i sortida deixa una càrrega positiva a la cara interna de la membrana (un dels tres ions de sodi que han entrat). Aquesta càrrega positiva contribuirà a l’estat elèctric de la membrana, al seu potencial elèctric i s’haurà de tenir en compte en la determinació del potencial de membrana sumant-se a l’activitat electrogènica de la bomba de sodi que ja hem comentat (i que representava uns 6 mil·livolts). Aquest bescanviador sodi-calci és fonamental per extreure el calci que va entrant en l’interior de les cèl·lules per diferents canals de calci (que aviat haurem de considerar), donat que aquest ió, el calci, està 10.000 vegades més concentrat a fora que en l’interior cel·lular (a fora 3 milimolar, a dintre 10 nanomolar). Aquesta entrada de calci es pot veure molt bé, per exemple, en l’entrada massiva d’aquest ió per provocar la neurotransmissió i l’alliberament de neurotransmissor en les terminacions nervioses i, òbviament, s’ha d‘extreure ben aviat per deixar les coses com estaven i tornar a començar si cal.
L’intercanviador té molt baixa afinitat pel calci intracel·lular i necessita que aquest ió hagi arribat a estar en una concentració alta, de l’ordre dels micromols, cosa que passa durant la neurotransmissió. En aquestes condicions i malgrat la baixa afinitat del mecanisme pel calci, pot extreure 50 vegades més calci que una bomba de calci veïna (que també contribueix a la complexa regulació del calci intracel·lular) que té alta afinitat (nanomols) i, que hidrolitzant ATP directament, també va extraient ions calci en repòs. Es tracta d’una bomba de calci similar a la del sodi que pot funcionar acoblada per a l’entrada de magnesi o bé desacoblada. Bombes, transportadors i aviat canals incorporats en les membranes cel·lulars i tindrem neurones funcionals. Ja hem vist el paper del calci en la formació del teixit ossi, i aviat veurem com és determinant en els mecanismes de secreció cel·lular i especialment en la neurotransmissió quan aconsegueix entrar a dintre de les terminacions nervioses. Perquè pugui entrar ha d’estar més concentrat a fora (perquè entra per canals), i per tant la concentració intracel·lular s’ha de mantenir baixa. Per això hi ha almenys els dos mecanismes per extraure’l, com acabem de comentar, un contranspotador amb sodi i una bomba ATPàsica.