Context
Els eritròcits són sacs d’hemoglobina que per fer un transport eficaç, han perdut el nucli i la maquinària de la síntesi de proteïnes i els resta un temps de vida limitat. Aquí es descriu el procés d’envelliment i destrucció final per reaprofitar el valuós ferro.
Des que l’eritròcit passa a la circulació de la sang i, a partir d’aquí durant 4 mesos, el nostre eritròcit circularà de forma constant. La més fantàstica arquitectura comunicativa és com ja hem descrit abans, el sistema circulatori, vascular. No hi ha cap cèl·lula allunyada d’un petit vas, per poder enviar-hi missatgers i traficar amb gasos, més enllà d’uns pocs micròmetres (amb un parell d’excepcions ben justificades i solucionades, el cristal·lí que intercanvia amb l’humor aquós, i el cartílag articular que ho fa amb el líquid sinovial).
El sistema vascular humà té una longitud de 100.000 km, encara que hi ha molts vasos en paral·lel i, afortunadament, una molècula o cèl·lula no els ha de recórrer tots en cada volta que pugui fer, des de i fins al cor de tornada. Amb una velocitat de 33-0,3 centímetres per segon en els vasos de diferent calibre, una molècula senyalitzadora o un eritròcit pot tardar minuts a completar una volta.
De vegades pot ser convenient buscar exemples de la vida quotidiana per entendre millor certs fenòmens biològics i físics que poden no ser immediatament evidents. En un riu català com el Llobregat, amb unes característiques pròpies de conca i llera, l’aigua que surt del pantà de la Baells a prop de Berga (quan s’inicia un desembassament en arribar el pantà a estar ple després de fortes pluges), tarda a arribar a la desembocadura, a l’altura de Sant Joan Despí aproximadament, unes 19 hores, en haver fet uns 85 km. Això si no s’hagués entretingut en fregaments per la riba o llera o en remolins diversos. 5 km/hora més o menys, una mica més d’un metre per segon que és unes 3 vegades més ràpid que la velocitat de la sang en les grans artèries humanes.
En alguna de les voltes pel laberint del sistema circulatori, el nostre eritròcit, la nostra hemoglobina i el nostre ferro han pogut portar oxigen (un àtom de O2), potser, a una neurona. Potser la molècula d’ATP produïda amb la participació d’aquest oxigen ha estat utilitzada per subministrar part de l’energia necessària a una bomba iònica que participi en el manteniment del gradient de sodi transmembrana en aquesta neurona, habilitant-la per mantenir, a la vegada, la capacitat de generar senyals elèctrics.
Finalment, arriba el moment quan l’eritròcit ja no pugui mantenir els seus propis gradients iònics, el de l’ió calci sobretot (malgrat que pot transportar oxigen encara), perquè no posseeix la maquinària de síntesi i renovació de proteïnes en haver perdut nucli i orgànuls durant la seva entrada a la sang, com hem vist, i haver-se especialitzat en el transport de gasos solament. Aleshores, havent esgotat els enzims de la glucòlisi que funcionaven des del moll de l’os, el seu esquelet esdevindrà rígid, endurit per la gran quantitat de calci que li entra (aquest ió està 10^4 vegades més concentrat a fora que a dintre i tendeix a entrar per qualsevol forat o canal que el deixi) i no pot ser ja bombejat a fora. Aquí arriba el final de la cèl·lula i també s’obre la possibilitat que es pugui recuperar el ferro dels seus grups hemo per oferir-lo a altres nous eritròcits.
On i com passa tot això?
Els organismes pluricel·lulars estan farcits d’adaptacions fantàstiques per poder gestionar la seva grandiosa complexitat. Entre les adaptacions, ens trobem un òrgan, la Melsa. Aquest òrgan abdominal està intercalat entre la gran aorta distribuïdora de sang oxigenada i el fetge. Per definir la seva funció en una senzilla frase es pot dir que és un filtre en la circulació sanguínia (com els múltiples ganglis limfàtics són filtres discrets en la circulació limfàtica). Filtres amb el sentit de retenir i transformar substàncies, microorganismes i cèl·lules sobretot des del punt de vista immunitari, defensiu. Alguna de les seves funcions com a filtre poden ser parcialment complementades pel fetge, i és que la sang venosa que surt de la melsa, conflueix per la vena esplènica amb les venes mesentèriques que venen de l’intestí portant molt de tot el que s’absorbeix dels aliments i, tot plegat, fa cap al fetge per la vena porta (vegeu capítol 13 d’aquesta part).
No perdem el fil, però, quina estructura cel·lular té la melsa per actuar com un filtre de la sang?
La base de l’organització cel·lular de la melsa és una xarxa de cèl·lules reticulars d’origen connectiu molt similar a la descrita abans en el moll de l’os. Aquesta disposició deixa grans espais entre les prolongacions cel·lulars com les malles o forats d’una esponja que poden ser ocupats per cèl·lules lliures que segueixen diferents processos en diferents llocs (com la producció de cèl·lules sanguínies en el moll de l’os que hem vist anteriorment i la destrucció de cèl·lules envellides en la melsa que veurem ara, vegeu figura 40). Al mateix temps, en la melsa, poden instal·lar-se també cèl·lules mares circulants provinents de la medul·la òssia i produir elements de la sang normals en determinades situacions (això s’anomena metaplàsia mieloide de la melsa) com la pèrdua de capacitat del mateix moll de l’os per intoxicació o neoplàsia. Normalment, però, els espais entre la xarxa cel·lular en la melsa estan ocupats per tota mena de cèl·lules sanguínies, sortides fa un temps del moll de l’os i que ja han circulat més o menys profusament per diferents parts del cos i finalment han caigut en la trampa del filtre esplènic.
En què consisteix aquesta trampa?
Aproximadament la meitat dels vasos capil·lars sanguinis es continuen per un laberint d’espais venosos que drenen la sang que els arriba i la porten cap a la vena esplènica. Aquests espais venosos s’anomenen sinus venosos perquè són grans cavitats irregulars que, això sí, acabaran drenant cap a la vena esplènica. L’altra meitat si fa o no fa dels capil·lars s’obren, acaben bruscament, sense poder seguir directament cap als espais venosos. Així és que la sang que porten surt cap als espais entre les cèl·lules reticulars, cap a les malles de la xarxa i es produeix, per dir-ho així, una hemorràgia fisiològica dintre de l’òrgan. Aquí hi trobem totes les cèl·lules i elements sanguinis, i també tot allò que pugui portar la sang i que ha recollit pels llocs per on ha passat, molècules normals com hormones, virus, bacteris, fongs provinents de zones infectades i també, fins i tot, cèl·lules tumorals invasives que han sortit d’un tumor i tracten de metastatitzar i colonitzar en altres llocs. També tòxics i verins i fàrmacs absorbits.
Per tot això la melsa és un filtre, una trampa. Els leucòcits defensius, immunitaris, també arriben aquí de la mateixa manera i tenen l’opció d’eliminar, fagocitar i destruir als estranys intrusos. Entre els leucòcits arriben els macròfags que originats en monòcits circulants faran aquesta funció destructiva entre d’altres. Tots els leucòcits poden dirigir respostes més complicades com la producció d’anticossos que protegiran l’organisme (els limfòcits T directors de la defensa -TH- o bé directament citotòxics i assassins -Tc- i els B productors dels anticossos; veure també capítol 23). Pràcticament tots els leucòcits actuant per desfer-se del que és estrany i conferir immunitat a l’organisme acaben arribant aquí.
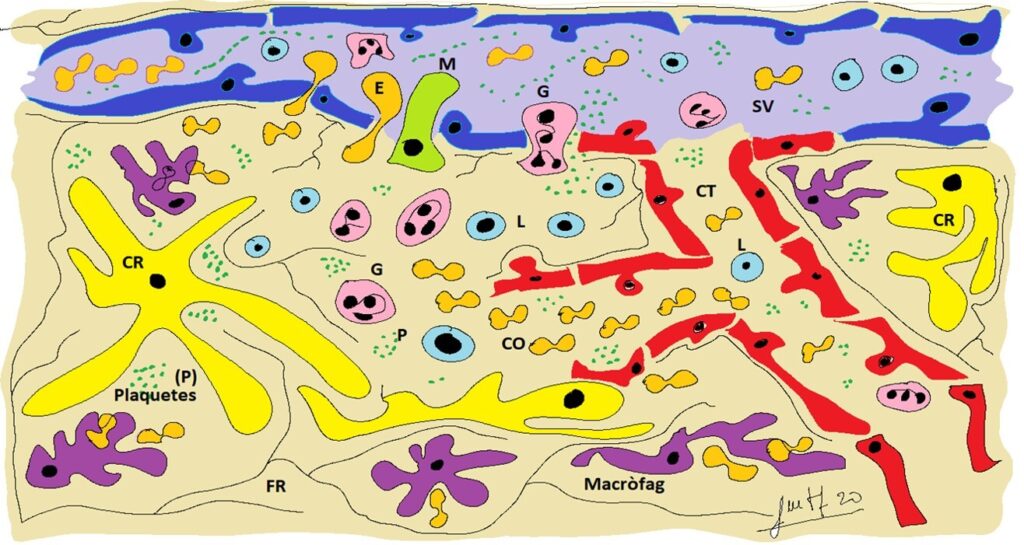
Figura 40. Estructura cel·lular de la melsa. La melsa és un òrgan limfoide que actua com un filtre en la circulació sanguínia. Està constituït per una xarxa tridimensional de cèl·lules reticulars (CR) i un laberint de capil·lars sanguinis i sinus (vasos irregulars) venosos (SV). La meitat dels capil·lars connecta directament amb la paret dels sinus i, per tant, la circulació sanguínia és tancada i ininterrompuda (CT). L’altra meitat de capil·lars s’obre directament en el teixit i és una circulació oberta (CO) produint una hemorràgia fisiològica. Aquí, els leucòcits actius (els monòcits poden quedar-se com a macròfags, i molts limfòcits quedar-se durant un temps) i els eritròcits joves i deformables poden sortir-ne travessant la paret dels sinus i entrant a la circulació tancada. Les cèl·lules sanguínies envellides i els elements estranys arribats per la sang són filtrats, retinguts i destruïts donant l’opció a macròfags i limfòcits de fer la seva funció defensiva. Dibuix que forma part del llibre: “Dibuixos d’Histologia. La histologia en cent dibuixos per a la pissarra”, JM Tomàs, Col·lecció eina, Publicacions de la URV, 2025.
La pregunta que ens podríem fer és com és resolt aquesta hemorràgia fisiològica?
Com retornen a la circulació totes les cèl·lules sanes, els eritròcits i leucòcits joves, encara vàlids, o fins i tot els leucòcits que han pogut adquirir en aquest lloc informacions d’elements estranys que caldria portar i estendre a altres estructures defensives de l’organisme. Les cèl·lules joves es poden deformar moltíssim de forma activa i passiva, inclús aplanar-se o aprimar-se com una fulla o com un fideu i així poder travessar per l’interstici, l’espai quasi inexistent entre les cèl·lules de la paret dels sinus venosos que hem citat abans i reingressar en el circuit vascular per sortir de la melsa i recircular. Les cèl·lules envellides i amb mala capacitat de regular els moviments iònics en la seva membrana, es tornen rígides (una certa hiperpolimerització i formació de ponts de lligam entre les molècules de l’esquelet) i no poden escapar-se. Tenim així una trampa perfecta.
A aquest lloc arriben les cèl·lules de la sang envellides al final de la seva expectativa vital. Els eritròcits, després d’uns 120 dies circulant i fent la seva feina, queden atrapats a la melsa i són fagocitats i destruïts pels monòcits i macròfags residents o també aquells arribats al lloc recentment. Amb el trencament s’allibera l’hemoglobina, la proteïna (les globines) s’hidrolitza i el ferro s’allibera i s’emmagatzema en cristallets d’hidròxid fèrric (anomenats ferritina) recoberts d’una proteïna (apoferritina) i tot plegat compactat en grànuls anomenats hemosiderina en l’interior del macròfag. Aquest ferro pot ser cedit a molècules de transferrina que passant a la circulació dels sinus surten en cerca d’alguna medul·la òssia hemoformadora per reiniciar un nou cicle de producció d’eritròcits novells. Pot ser que un àtom de ferro, dels que en venim parlant, es passi fent aquest circuit una bona part o tota la vida de l’organisme que l’allotja. També els leucòcits vells, especialment els granulòcits que viuen poques hores circulant, poden ser eliminats així. Les plaquetes retingudes en gran número en els espais de la melsa poden ser destruïdes també si envellides o bé poden ser reaprofitades. Un ben curiós mecanisme perfeccionat en el decurs de l’evolució, permet que milions de plaquetes en bon estat, retingudes temporalment, surtin forçades de cop de la melsa en situacions en les quals podrien ser necessàries per estroncar hemorràgies. La càpsula o coberta connectiva protectora de la melsa té moltes cèl·lules musculars llises, de les que es troben en els òrgans interns per provocar-hi moviments i, si es contrauen de cop, espremen el teixit de la melsa i forcen la sortida de plaquetes hemostàtiques cap a la circulació sanguínia. En les reaccions d’alarma per perills imminents, el sistema nerviós (que es caracteritza per la seva rapidesa operativa) estimula reaccions nervioses pròpies d’alerta en el cervell i també, de retruc, provoca reaccions hormonals com l’alliberament de l’hormona adrenalina des de la medul·la suprarenal al sistema circulatori. Aquesta hormona, en arribar en poc temps a la melsa, provoca la contracció de la càpsula i la sortida de plaquetes ja preparades. El fenomen forma part d’una reacció d’alarma que pot tenir un animal perseguit o un humà fent un salt en paracaigudes. L’augment de la pressió sanguínia per irrigar millor el sistema musculoesquelètic, l’increment de la freqüència i profunditat de les inspiracions i l’increment del metabolisme energètic són fenòmens associats produïts també per l’adrenalina en una reacció multifactorial i complexa d’alarma o estrès.