Context
La producció d’àcid a l’estómac és un procés que combina de forma complexa i rigorosa la regulació neuronal, hormonal sistèmica i paracrina. El nostre focus en aquesta Secció està posat especialment en la comparació dels mecanisnes nerviosos i hormonals i la gestió de l’acidesa gàstrica és un exemple excel·lent.
La producció d’àcid clorhídric (HCl) a l’estómac és un procés altament regulat, que combina senyals neuronals, hormonals i paracrins amb un mecanisme molecular complex que ocorre en les cèl·lules parietals (també anomenades oxíntiques, acidòfiles) de l’epiteli de la mucosa gàstrica. Aquestes cèl·lules estan situades en la paret de les glàndules anomenades fúndiques en el cos i fundus gàstric, no es troben però, en les regions pericardials i peripilòriques de la mucosa on les glàndules, en aquestes cruïlles estratègiques, produeixen solament moc protector.
El resultat final de l’activitat de les cèl·lules parietals és la secreció d’un líquid extremadament àcid (pH ~1) gràcies a la bomba H⁺/K⁺ ATPasa, que trencant ATP obté l’energia pel seu canvi de conformació i transposició dels dos ions.
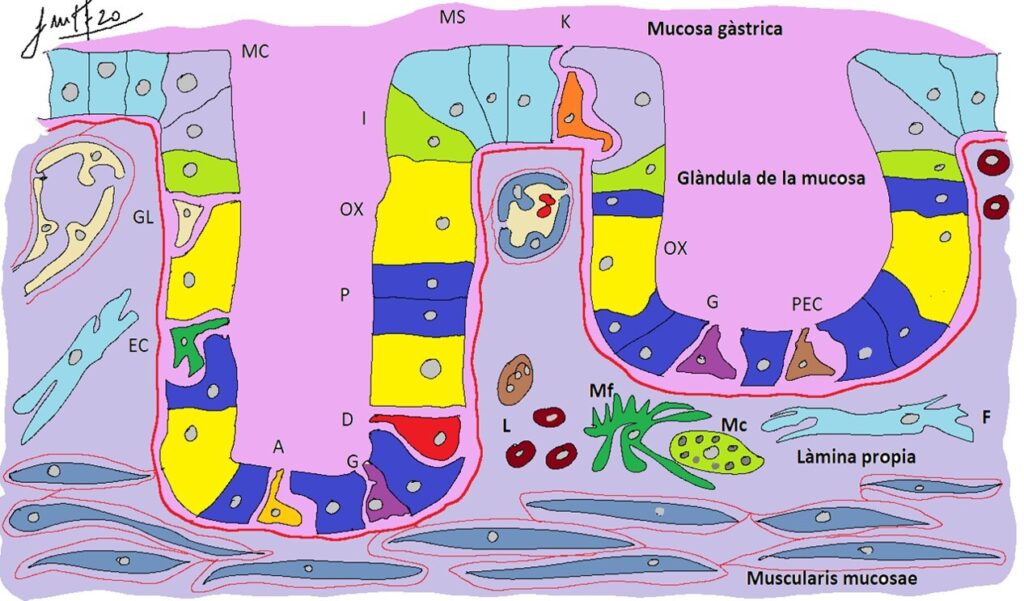
La imatge mostra la disposició de les glàndules en la mucosa gàstrica amb el conjunt variat de cèl·lules, especialment les de l’epiteli. Aquesta imatge i la següent són del llibre “Dibuixos d’Histologia” referenciat en aquesta web. L’epiteli gàstric forma glàndules tubulars ramificades restringides a la mucosa, sense travessar la capa muscularis mucosae i que s’obren a la llum per mitjà de fovèoles. L’epiteli cilíndric simple està integrat per cèl·lules mucoses superficials (MS), mucoses del coll (MC), indiferenciades (I), principals o pèptiques (P), parietals o oxíntiques (OX) i diverses endocrines (les principals: A, G, GL, EC, D, K, PEC o ECL). Les mucoses produeixen moc àcid i neutre respectivament per protegir la superfície. Les principals fan pepsinogen que es trenca en pepsina per hidrolitzar proteïnes. Les oxíntiques produeixen àcid clorhídric i un factor intrínsec per a l’absorció de vitamina B12 que es farà més avall, en el duodè. Les G produeixen gastrina; les PEC (ECL), histamina; les A, enteroglucagó; les GL, glicentina; les D, somatostatina, i les K, pèptid inhibidor gàstric. Especialment rellevants són les cèl·lules G, que en resposta a la presència d’aliments dintre de l’estómac, alliberen la gastrina que promou la secreció de moc, la proliferació de les cèl·lules indiferenciades, la secreció de les cèl·lules P i OX, i l’activitat de les cèl·lules contràctils de la muscularis mucosae. Mc, macròfag; Mc, mastòcit; F, fibroblast.
Nota
Les cèl·lules del sistema endocrí dispers (originades en el neuroectoderma dorsal de l’embrió) són considerades, la majoria d’elles, com formant part de l’anomenat sistema APUD (amine precursor uptake and decarboxilation) en observar que a més de produir un pèptid hormonal (algunes no ho fan), moltes també secreten alguna amina com la 5-OH triptamina -serotonina- obtinguda per descarboxilació de l’aminoàcid triptòfan.
Aquestes cèl·lules s’anomenen amb lletres majúscules. Per exemple, cèl·lules B (abans beta, productores d’insulina en els illots de Langerhans del pàncrees), les cèl·lules C (productores de calcitonina en la glàndula tiroide), les cèl·lules G (productores de gastrina), etc. També se les ha anomenat cèl·lules argentafins, argiròfiles o cromafins per l’afinitat de moltes d’elles amb metalls com la plata, l’or, l’osmi o el crom en tincions histològiques dissenyades per demostrar la seva presència en els teixits. Una denominació amb força èxit ha estat la de cèl·lules cromafins i en el tub digestiu cèl·lules enterocromafins (enterocromafin cells EC, o també paracrine enterocromafin cells PEC).
Ha estat consensuat que les cèl·lules PEC en la mucosa de tot el tub digestiu produeixen i secreten serotonina que contribueix a regular localment la motilitat del tub. Això no obstant, també s’utilitza el nom PEC com a genèric de les cèl·lules endocrines disperses pel tub digestiu. Amb relació a les cèl·lules productores d’histamina també se les anomena ECL (enterocromafin like) per mostrar certes diferències amb les EC.
La utilització com a sinònims de les denominacions PEC i ECL és freqüent.
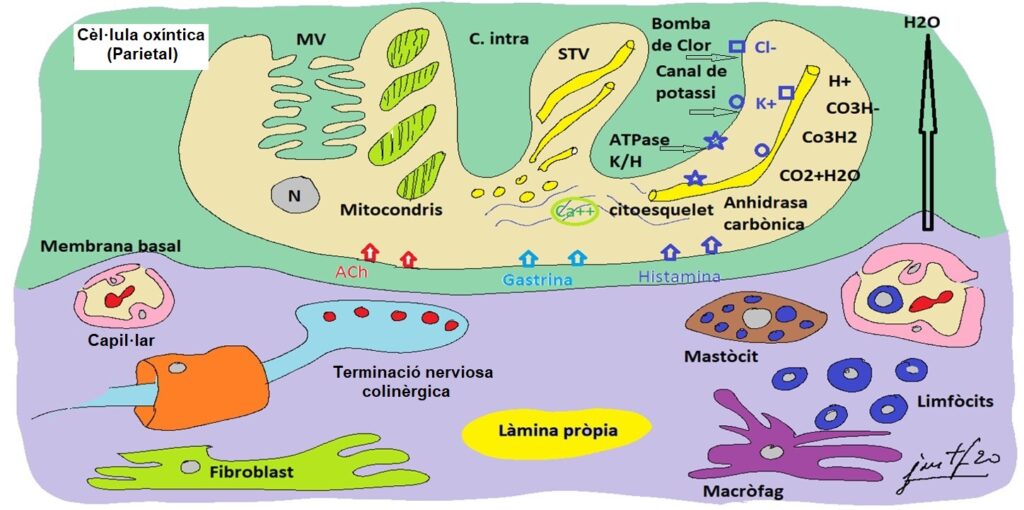
La imatge mostra com les cèl·lules oxíntiques OX, estimulades per la gastrina (i per la histamina de les cèl·lules PEC -ECL- i l’acetilcolina vagal, entre altres estímuls), incorporen a la membrana apical tubs i vesícules (Sistema tubulo vesicular, STV, que incrementen la superfície amb canalicles i microvellositats, MV. La membrana d’aquests canalicles porta canals de potassi (el qual sortirá a favor de gradient), una bomba de clor (extreu clor) i una bomba ATPasa que intercanvia K (de fet recupera el que acaba de sortir) amb els protons obtinguts internament a partir de CO3H2 per una anhidrasa carbònica activada simultàniament.
Mecanisme cel·lular
La cèl·lula que exerceix la funció s’anomena cèl·lula parietal com hem dit, també oxíntica per la intensa acidofília, eosinofília, que mostra amb els colorants histològics clàssics, en la paret de les glàndules fúndiques.
Posseeix abundants canalicles secretors: membranes altament plegades que generen abundantíssimes microvellositats. A prop d’un 40% del volum cel·lular està ocupat per mitocondris indicant la necessitat d’una gran producció d’ATP pel funcionament de les bombes iòniques.
També posseeix abundants estructures tubulars i vesícules (moltes es veuen com a talls transversals dels tubs) que s’anomenen en conjunt sistema tubulovesicular i que són tubs i vesícules internes que contenen les bombes H⁺/K⁺ ATPasa inactives fins que un estímul pertinent fusiona tubs i vesícules amb la membrana canalicular.
Els estímuls que activen a les cèl·lules parietals i la secreció d’HCl són variats, neurals i hormonals ben coordinats.
1 En primer lloc, la neurotransmissió colinèrgica (l’acetilcolina -ACh- és el neurotransmissor) per terminacions nervioses del nervi vague (parasimpàtic).
El receptor metabotròpic en les cèl·lules oxíntiques és el muscarínic M3 que operat per l’ACh produeix un increment del Ca²⁺ intracel·lular i l’activació d’una isoforma de la proteïna cinasa C (PKC, depenent del calci) que, al través de l’activació del citoesquelet contràctil promou el desplaçament del STV, la seva fusió amb la membrana cel·lular i la corresponent translocació de bombes H⁺/K⁺ ATPasa, i de canals de potassi i clor. En la situació de màxima incorporació del STV amb el plasmolemma cel·lular dels canalicles, l’Increment de la superfície apical pot augmentar fins a 10 vegades.
2 En segon lloc, l’estimulació paracrina per l’hormona local Gastrina.
La Gastrina és alliberada per les cèl·lules G situades especialment en l’antre pilòric i actua sobre receptors CCK-B (Cholecystokinin B receptors) en les cèl·lules oxíntiques promovent un increment de Ca²⁺ intracel·lular i l’activació de la PKC amb el resultat vist abans. Els receptors CCK‑B o receptors CCK2 són receptors de membrana acoblats a una proteïna Gq que responen principalment a la gastrina i també a la colecistocinina en el pàncrees i via biliar.
La gastrina és un potent estimulador de pràcticament totes les cèl·lules de la mucosa gàstrica amb la finalitat d’optimitzar la funció digestiva de l’estómac. Amb el seu control, les cèl·lules mucoses secreten més moc protector preparant l’arribada del HCl, les P produeixen pepsina per iniciar el trencament de les proteïnes ingerides, les cèl·lules indiferenciades en l’epiteli de la mucosa es preparen per dividir-se i substituir a les alterades després del seu cicle vital d’uns tres dies. Fins i tot les cèl·lules musculars llises associades a la mucosa incrementen la motilitat.
També, les cèl·lules G estimulen a les cèl·lules ECL promovent que alliberen la Histamina que actuarà sobre el receptor de tipus H2 acoblat a una proteïna G i que amb l’increment de la producció de cAMP i activació de la PKA estimularà la incorporació del STV a la membrana cel·lular i la màxima activació de la bomba de protons.
Així doncs, la incorporació de les membranes del STV a la membrana plasmàtica comporta la incorporació de les proteïnes que transporta i especialment, la bomba de protons (que tindrà l’oportunitat d’extreure hidrogenions a l’exterior), i els canals de potassi i clor (que en deixar sortir aquest catió i anió respectivament permetran completar la formació del HCl).
Inhibició del mecanisme cel·lular
Quan actuen junts els tres mediadors (ACh + gastrina + histamina), la secreció d’HCl es multiplica exponencialment. La massiva secreció d’àcid en la mucosa i cavitat gàstrica comporta una extrema capacitat agressiva sobre els aliments i també sobre les cèl·lules i els teixits pròpis en la paret gàstrica. En conseqüència, el mecanisme regulador inhibidor ha de ser ràpid i precís. La inhibició la realitzen localment les cèl·lules D veïnes que produeixen Somatostatina (hormona que frena l’activitat metabòlica en moltes cèl·lules i és en certa manera contrària a l’hormona del creixement somatotròpica). Les cèl·lules D responen a la presència massiva de protons en la cavitat gàstrica i secreten la somatostatina al teixit connectiu subepitelial on difon com un mediador paracrí, com prèviament ho han fet la gastrina i la histamina. La somatostatina inhibeix a les cèl·lules G a les ECL i directament a l’oxíntica productora d’àcid.
També, els diferents tipus de cèl·lules mucoses superficials i del coll de les glàndules fúndiques produeixen prostaglandines (PGE2) que en difondre localment i disminuir la producció del segon missatger cAMP inhibeixen la via de la histamina.
Mecanisme molecular intracel·lular
Hem vist la regulació neuroparacrina de les cèl·lules oxíntiques. En l’àmbit intracel·lular, el mecanisme de producció d’àcid s’inicia amb la fusió depenent de calci d’abundants tubs del STV amb la membrana dels canalicles secretors i paral·lelament l’activació de l’enzim anhidrasa carbònica. Aquesta anhidrasa catalitza la formació de bicarbonat a partir d’aigua i CO2 (del metabolisme cel·lular), seguit de la ionització de la molècula amb la reacció:
CO2+H2O → H2CO3 → H+ + HCO3−
Els protons són portats cap a la llum dels canalicles per l’activitat de la H⁺/K⁺ ATPasa que ara porta de tornada el K⁺ (que prèviament havia sortit pel canal incorporat a la membrana des del STV), cap a l’interior del citoplasma consumint 1 molècula d’ATP per cada H⁺ expulsat.
El bicarbonat (HCO₃⁻) surt, en direcció contrària, cap a la sang, per l’acció d’un intercanviador Cl⁻/HCO₃⁻ (l’antiport AE2 –Anion Exchanger 2– que porta el clorur (Cl⁻) en una direcció (interior) i el bicarbonat (HCO₃⁻) en la direcció oposada, sense despesa d’ATP i aprofitant el gradient natural de sodi com a facilitador. L’entrada de Cl⁻ conclou amb la seva sortida cap a la llum del canalicul a través dels canals de clor (CFTR i altres -CFTR vol dir «Cystic Fibrosis Transmembrane Conductance Regulator»-) que prèviament s’havien incorporat també a la membrana cel·lular amb la fusió de les cisternes del STV.
Així finalment tenim en la llum dels canalicles i fluint cap a la cavitat gàstrica una barreja de H⁺ + Cl⁻, àcid clorhídric (HCl) per afavorir la digestió àcida dels aliments.
Per concloure, cal dir que el K⁺ que entra per la bomba H⁺/K⁺ ATPasa, torna a sortir pels canals de K⁺ cap als canaliculs permetent que la bomba continuï funcionant mentre no s’inhibeix l’activitat de les cèl·lules oxíntiques per la somatostatina i les prostaglandines com hem comentat.
L’actuació precoç del sistema nerviós parasimpàtic és definida sovint com a fase cefàlica de la producció d’àcid clorhídric (1/3 de la secreció). L’origen està en el sistema nerviós central en el processament de senyals visuals i de l’olor, o el pensament fins i tot, del menjar. A la fase cefàlica segueix la fase gàstrica (60%) induïda especialment per la distensió gàstrica produïda per l’arribada dels aliments que provoca reflexos vagals, i per l’actuació directa de molècules dels aliments (com alcohol, cafeïna, aminoàcids) sobre les cèl·lules G que secreten la gastrina.
En resum, els estímuls com l’ACh, la gastrina i la histamina promouen un increment dels segons missatgers Ca²⁺ i/o cAMP, que porten a la translocació i activació de la H⁺/K⁺ ATPasa. Simultàniament, la generació d’H⁺ per una anhidrasa carbònica i la secreció d’H⁺ i Cl⁻ a la llum dels canaliculs permet la formació d’HCl. La Inhibició del mecanisme és conduïda especialment per la somatostatina i per prostaglandines.
Així doncs, tenint en compte totes aquestes consideracions, la secreció d’àcid clorhídric en l’estómac permet una acurada comparació de mecanismes neurals i hormonals i les premisses de la seva col·laboració.